Auteur : PhytoGenfi

  • Prostate et graines de courge

    Une glande placée au mauvais endroit

    La prostate est une glande de la taille d’une châtaigne, située sous la vessie. Sa particularité anatomique explique tous ses symptômes : elle entoure l’urètre, le canal par lequel l’urine quitte la vessie.
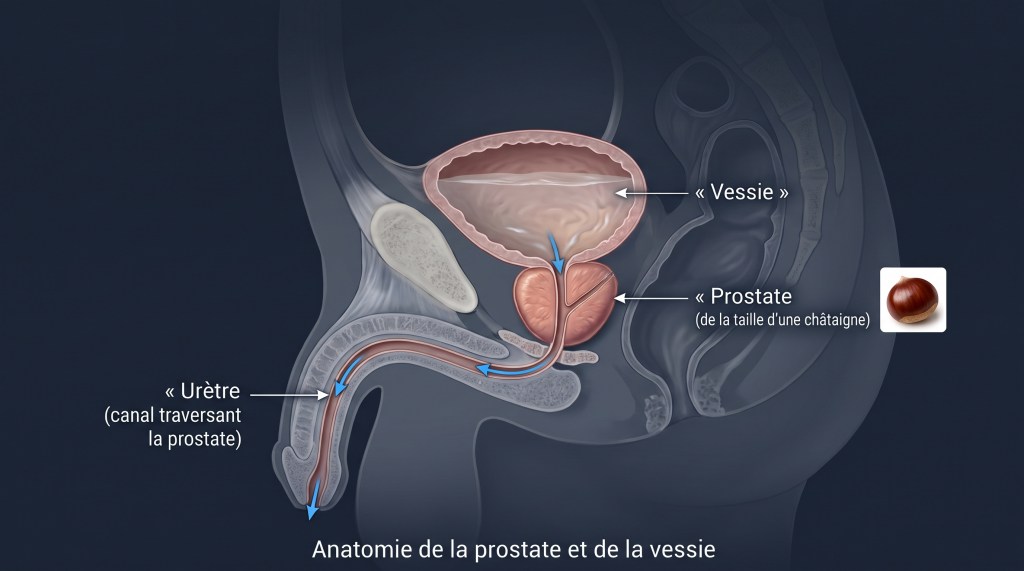
    Avec l’âge, elle augmente de volume chez la plupart des hommes. C’est l’hypertrophie bénigne de la prostate (HBP), ou adénome prostatique. La synthèse d’autopsies de référence, publiée en 1984 à partir de plus de 1 000 prostates, donne une prévalence de 8 % entre 31 et 40 ans et de 50 % entre 51 et 60 ans ; elle atteint environ 80 % dans la neuvième décennie [1]. Ces chiffres décrivent des lésions visibles au microscope : tous ces hommes n’ont pas de symptômes.

    Quand il y en a, ils sont de deux ordres :

    • des signes de vidange : jet faible, attente avant la miction, jet interrompu, sensation de vidange incomplète ;
    • des signes de remplissage : envies pressantes, mictions fréquentes, réveils nocturnes.

    « Bénigne » signifie que l’HBP n’est pas un cancer et ne se transforme pas en cancer. Mais les mêmes symptômes peuvent accompagner un cancer de la prostate, ce qui impose un examen médical avant tout traitement, y compris par les plantes.

    Premier paradoxe : l’hormone baisse, la prostate grossit

    Les hommes castrés avant la puberté ne développent pas d’HBP. La prostate dépend donc des androgènes. Pourtant, la testostérone diminue avec l’âge, et c’est précisément à cet âge que l’adénome apparaît.

    L’explication classique passe par une enzyme, la 5-alpha-réductase, qui transforme dans la prostate la testostérone en dihydrotestostérone (DHT), plus active sur le récepteur des androgènes. Pendant longtemps, on a enseigné que le tissu hypertrophié contenait plusieurs fois plus de DHT que le tissu normal. Ce chiffre figure encore dans de nombreux cours.

    Il repose sur un artefact. En 1983, Walsh, Hutchins et Ewing ont montré que les prostates « normales » des études antérieures provenaient d’autopsies, et que la DHT disparaît du tissu en quelques heures après la mort. Mesurée sur des tissus prélevés au cours d’interventions chirurgicales, la DHT est identique dans la prostate normale et dans la prostate hypertrophiée : 5,1 contre 5,0 ng/g [2].

    Les androgènes sont donc nécessaires, mais l’HBP n’est pas un simple excès d’hormone. D’autres facteurs sont discutés : l’évolution du rapport entre œstrogènes et testostérone avec l’âge, le dialogue entre le stroma et l’épithélium de la glande, et une inflammation chronique fréquemment retrouvée dans les tissus hypertrophiés. Le mécanisme précis reste en partie inconnu.

    Deuxième paradoxe : la taille ne fait pas les symptômes

    Le volume de la prostate est mal corrélé à la gêne ressentie. Certains hommes ont une grosse prostate sans symptôme ; d’autres une prostate modeste et trois réveils par nuit. Trois composantes s’additionnent.

    ComposanteMécanismeConséquence
    StatiqueLe volume de la glande comprime l’urètreObstacle permanent, lentement évolutif
    DynamiqueLes fibres musculaires lisses de la prostate et du col vésical, commandées par des récepteurs alpha-1, se contractentObstacle variable, indépendant de la taille
    VésicaleLe muscle de la vessie, qui force contre l’obstacle, s’épaissit et devient irritableEnvies pressantes et fréquentes

    Les réveils nocturnes ont de plus souvent d’autres causes que la prostate : une production excessive d’urine la nuit (boissons du soir, médicaments, causes cardiaques ou rénales) ou une apnée du sommeil.

    Les deux grandes familles de médicaments correspondent à ces composantes. Les alpha-bloquants (tamsulosine, alfuzosine) relâchent le muscle lisse et agissent en quelques jours sur la composante dynamique. Les inhibiteurs de la 5-alpha-réductase (finastéride, dutastéride) réduisent lentement le volume, sur plusieurs mois. Ces derniers abaissent le PSA d’environ 50 % après six mois de traitement, ce dont il faut tenir compte pour interpréter un dosage [3].

    Ce cadre a deux conséquences pour les plantes. Un produit peut, en théorie, soulager sans réduire la taille de la prostate. Et un critère de jugement fondé sur les symptômes, comme le score IPSS, est très sensible à tout ce qui modifie le comportement du patient.

    L’outil de mesure : le score IPSS et son seuil

    Presque tous les essais utilisent le score international des symptômes prostatiques (IPSS) : sept questions, un total de 0 à 35. Un score de 8 à 19 correspond à des symptômes modérés, 20 et plus à des symptômes sévères.

    La question décisive est celle de la plus petite différence qu’un patient perçoit. Dans l’étude de référence, les hommes qui se déclaraient « légèrement améliorés » avaient gagné en moyenne 3,1 points [4]. Ce seuil d’environ 3 points sert de repère dans toute la suite : un écart statistiquement significatif mais inférieur à 3 points n’est pas ressenti par le patient.

    La graine de courge : les essais un par un

    La graine de Cucurbita pepo a une longue tradition d’usage. Elle contient des phytostérols particuliers, dits delta-7, dont on suppose qu’ils interfèrent avec l’action de la DHT. Ce mécanisme est plausible en laboratoire. Les essais cliniques disent autre chose.

    L’essai Bach (2000)

    Cet essai allemand a comparé, en double aveugle et pendant douze mois, un extrait de graine de courge (deux gélules par jour, chaque gélule de 500 mg correspondant à 10 g de graines) à un placebo, chez 476 hommes suivis dans 65 cabinets d’urologie [5].

    • Le score IPSS passe de 17,6 à 10,9 sous extrait et de 17,7 à 12,2 sous placebo : l’écart est de 1,3 point (p = 0,014 en intention de traiter).
    • Dans l’analyse limitée aux patients ayant suivi le protocole, la différence n’est plus significative (p = 0,088).
    • 65 % des patients répondent sous extrait, contre 54 % sous placebo.
    • Les patients dont le score variait de 3 points ou plus pendant le mois de placebo préalable étaient exclus. Ce procédé courant écarte les sujets les plus sensibles au placebo et tend à agrandir l’écart.

    L’essai est donc positif sur le plan statistique, avec un effet inférieur de moitié au seuil perceptible.

    L’essai GRANU (2015)

    C’est le plus grand essai consacré à la graine de courge : 1 431 hommes, douze mois, trois groupes [6]. Le premier consommait des graines entières (5 g deux fois par jour), le deuxième des gélules d’extrait, le troisième un placebo.

    Critère à 12 moisGraines entièresExtraitPlacebo
    Répondeurs (baisse ≥ 5 points)58,5 %46,3 %47,8 %
    Variation du score IPSS−5,4−4,2−4,0
    Réveils nocturnes−1,0−0,9−0,8
    Volume de la prostate+2,7 ml+2,3 ml+2,6 ml

    Quatre constats.

    L’extrait ne fait pas mieux que le placebo. C’était la comparaison principale de l’essai, menée en double aveugle. Elle est négative.

    Le groupe des graines n’était pas en aveugle. On ne peut pas déguiser des graines en placebo : ces patients savaient ce qu’ils prenaient. Le seul groupe qui l’emporte est donc le seul exposé à l’effet d’attente.

    Le résultat des graines est descriptif. Selon le plan statistique fixé à l’avance, l’échec de l’extrait interrompait la série de tests confirmatoires. La supériorité des graines ne constitue pas une preuve, ce que les auteurs écrivent eux-mêmes.

    La prostate grossit de la même façon dans les trois groupes. Environ 2,5 ml en un an, avec ou sans courge.

    Le succès apparent des graines admet plusieurs explications que l’essai ne permet pas de départager : l’absence d’aveugle, la quantité (10 g de graines contre une dose bien moindre d’extrait), ou un effet lié à la graine entière. L’essai était financé par un industriel, GlaxoSmithKline Consumer Healthcare (Allemagne).

    La méta-analyse de 2022

    Les données individuelles des essais Bach et GRANU ont été regroupées pour l’extrait [7].

    • Le taux de répondeurs est supérieur de 3 % sous extrait ; le rapport de cotes est de 1,17 (intervalle de confiance à 95 % : 0,94 à 1,45 ; p = 0,16), donc non significatif.
    • L’écart de score IPSS est de 0,66 point (0,12 à 1,21).
    • Les auteurs rappellent eux-mêmes qu’il faut environ 3 points pour qu’un patient perçoive une amélioration.
    • Le débit urinaire, le résidu après miction et le volume prostatique ne diffèrent pas.
    • Les données du groupe « graines entières » de GRANU ont été laissées de côté.
    • Tous les auteurs déclarent un lien avec le fabricant de l’extrait, qui a financé l’analyse.

    Les autres essais

    Hong et coll. (2009), souvent cité en faveur de l’huile de pépins de courge, ne permet aucune conclusion [8]. Les patients ont été répartis selon leur ordre de participation et non par tirage au sort. Le groupe placebo comptait 7 patients, avec un score de départ nettement plus bas que le groupe courge (15,4 contre 20,7). Près d’un quart des patients ont abandonné. Les auteurs ne rapportent aucune différence significative entre les groupes : toutes les « améliorations » sont des comparaisons de chaque groupe avec son propre état initial, et le groupe placebo s’améliore lui aussi.

    Zerafatjou et coll. (2021) ont comparé l’huile de pépins de courge (360 mg deux fois par jour) à la tamsulosine chez 73 hommes pendant trois mois, en simple aveugle. Les symptômes s’améliorent dans les deux groupes, et les auteurs concluent que l’huile n’est pas aussi efficace que la tamsulosine [9].

    Une méta-analyse cubaine (2021) regroupe Bach, Hong et GRANU, soit 1 403 hommes. Elle trouve une différence moyenne de 0,76 point d’IPSS (0,13 à 1,40) et conclut à l’absence d’intérêt clinique [10].

    Le statut réglementaire

    L’Agence européenne du médicament classe la graine de courge en « usage traditionnel » [11]. Ce statut signifie que l’efficacité est jugée plausible sur la base de l’ancienneté de l’usage, et non démontrée par des essais. Le rapport d’évaluation, antérieur à GRANU, ne s’appuyait que sur un seul essai contrôlé et notait un effet faible sur les symptômes, sans modification des paramètres objectifs. Les recommandations 2026 de l’Association européenne d’urologie mentionnent la courge dans la liste des monographies européennes, sans lui accorder de recommandation [12].

    La piste de la vessie

    L’indication européenne couvre aussi les troubles liés à une vessie hyperactive. Quelques travaux vont dans ce sens, mais ils sont fragiles : une étude japonaise sur l’huile de Cucurbita maxima (10 g par jour, 12 semaines, 45 personnes) était menée en ouvert et sans placebo [13]. Un essai pilote américain en cours teste un extrait d’huile de pépins de courge (1 000 mg par jour, 12 semaines) chez une quarantaine de femmes ayant une vessie hyperactive, sans groupe placebo [14] : il ne permettra pas de trancher. C’est une hypothèse ouverte, pas un résultat.

    Bilan

    FormeMeilleur résultat contre placeboValeur de la preuve
    Extrait en gélules1,3 point (Bach), 0 (GRANU), 0,66 point (regroupé)Sous le seuil perceptible ; essais et analyse liés au fabricant
    Graines entières, 10 g/jEnviron 1,4 point (GRANU)Groupe non aveugle, résultat descriptif
    HuileAucune différence démontrée ; inférieure à la tamsulosineEssais petits et biaisés
    Volume, débit, résiduAucun effetConcordant dans toutes les études

    Pourquoi tant d’hommes se sentent mieux

    Dans GRANU, près d’un homme sur deux répond sous placebo ; chez Bach, plus d’un sur deux. Sur l’ensemble des essais contrôlés de douze mois dans ce domaine, le score IPSS baisse en moyenne de 4,4 points sous placebo, avec des écarts de 0,7 à 6,8 points selon les essais (25 essais, plus de 10 000 patients) [15]. C’est davantage que l’écart attribué à n’importe quelle forme de courge.

    Cette amélioration est réelle. Elle additionne plusieurs mécanismes :

    • les fluctuations naturelles : les symptômes urinaires varient d’un mois à l’autre ;
    • la régression vers la moyenne : on entre dans un essai, ou on commence un traitement, au moment où les symptômes sont au plus haut ; ils ont donc tendance à redescendre d’eux-mêmes ;
    • les changements de comportement : participer à un essai, remplir un questionnaire ou un calendrier de mictions conduit à boire moins le soir, à réduire café et alcool ;
    • l’effet d’attente proprement dit, lié à la conviction de recevoir un traitement.

    Les trois premiers mécanismes se produisent sans rien avaler. C’est ce qui explique qu’une plante puisse « marcher » dans l’expérience de chacun sans faire mieux qu’un placebo dans un essai. C’est aussi une information utile : les leviers comportementaux sont accessibles directement.

    Deux objections fréquentes

    « Les graines n’étaient pas trempées »

    Le trempage réduit l’acide phytique, forme de réserve du phosphore dans les graines, qui retient les minéraux comme le zinc. Il peut donc améliorer un peu l’absorption du zinc, bien que la baisse de l’acide phytique ne se traduise pas toujours par davantage de zinc disponible [16].

    Pour la prostate, l’argument ne tient pas, pour trois raisons.

    • Les molécules supposées actives sont des stérols et des acides gras. Elles ne sont pas liées à l’acide phytique et le trempage ne les concerne pas.
    • Dix grammes de graines apportent environ un milligramme de zinc (7,6 à 10 mg pour 100 g selon qu’elles sont décortiquées ou entières) [32]. Aucun essai ne montre que le zinc améliore l’HBP, et une forte supplémentation prolongée a été associée à un risque accru de cancer avancé de la prostate dans une grande cohorte américaine (plus de 100 mg par jour, risque relatif 2,29) [17].
    • Dans GRANU, le groupe extrait recevait les constituants lipophiles déjà extraits et concentrés, sans paroi cellulaire ni acide phytique. C’est ce groupe qui n’a pas fait mieux que le placebo.

    La mastication compte probablement davantage que le trempage. Pour l’amande, il est démontré que les parois cellulaires intactes retiennent les lipides : après mastication, la plus grande partie des graisses reste enfermée dans les cellules, et l’on retrouve des cellules intactes dans les selles [18, 19]. L’extrapolation à la graine de courge est plausible mais n’a pas été vérifiée.

    « Et les autres plantes ? »

    Le palmier de Floride (Serenoa repens). La revue Cochrane de 2023, qui regroupe 27 études et plus de 4 600 hommes, conclut avec un haut niveau de certitude que le Serenoa seul n’apporte que peu ou pas de bénéfice, à court comme à long terme [20]. Pourtant, l’Agence européenne du médicament reconnaît à un extrait de Serenoa un « usage bien établi », son niveau le plus élevé pour une plante.

    Les deux positions ne portent pas sur le même objet. L’EMA ne reconnaît l’usage bien établi qu’à l’extrait obtenu à l’hexane ; l’extrait éthanolique reste en usage traditionnel. La revue Cochrane regroupe tous les extraits. Les recommandations européennes d’urologie soulignent que les extraits d’une même plante ne sont pas interchangeables, et retiennent pour le seul extrait à l’hexane un bénéfice modeste : 0,64 miction nocturne en moins et un débit maximal amélioré de 2,75 ml/s par rapport au placebo [12]. Les deux grands essais publics américains, négatifs, utilisaient d’autres extraits : au dioxyde de carbone pour STEP [21], à l’éthanol pour CAMUS, jusqu’à trois fois la dose usuelle [22].

    La racine d’ortie (Urtica dioica). C’est la racine qui est utilisée, non les parties aériennes, plutôt diurétiques. En laboratoire, un extrait aqueux de racine bloque la liaison de la SHBG, protéine de transport des hormones sexuelles, à son récepteur sur les membranes de prostate humaine [23], et plusieurs lignanes de la racine se fixent sur la SHBG [24]. Ce mécanisme est élégant, mais aucune étude ne le confirme chez l’homme, et les concentrations utilisées in vitro sont élevées.

    Sur le plan clinique, l’essai le plus solide (246 hommes, un an, double aveugle) trouve un écart de 0,8 point d’IPSS avec le placebo : 18,7 à 13,0 sous ortie, 18,5 à 13,8 sous placebo [25]. Un essai iranien de 620 hommes rapporte des résultats spectaculaires (81 % d’améliorés contre 16 %) [26], mais son auteur a vu plusieurs de ses publications rétractées pour des analyses statistiques inappropriées, et quatorze autres ont fait l’objet d’avis de réserve en 2023 [27]. L’essai sur l’ortie n’est pas rétracté, mais on ne peut pas s’appuyer sur lui. La tolérance de la racine d’ortie est bonne : dans l’essai allemand, les événements indésirables étaient moins nombreux sous ortie que sous placebo, et une revue de synthèse juge le risque d’effets indésirables très faible [34].

    Une association fixe de Serenoa et de racine d’ortie a montré un écart de 2 points avec le placebo après 24 semaines [28]. L’effet ne peut pas être attribué à l’une ou l’autre plante.

    Le prunier d’Afrique (Prunus africana). Son écorce provient d’un arbre menacé. En France, le médicament qui en était issu a cessé d’être commercialisé en juillet 2022, pour des raisons écologiques liées à l’approvisionnement [29].

    Le paradoxe de l’hexane

    L’extrait de Serenoa le mieux documenté est obtenu avec l’hexane, solvant issu du pétrole et classé toxique. Dans le monde des médecines naturelles, ce solvant suscite une méfiance spontanée, y compris lorsqu’il est absent du produit fini. Le paradoxe mérite d’être examiné, car il mélange trois questions distinctes.

    Le résidu dans le produit. Un solvant d’extraction n’est pas un ingrédient : il sélectionne les molécules qui quittent la plante, puis il est évaporé. L’hexane, très apolaire et volatil (il bout vers 69 °C), extrait la fraction lipidique du fruit et s’élimine facilement. Les résidus sont encadrés : la norme internationale ICH Q3C range l’hexane parmi les solvants de classe 2, avec une exposition journalière admissible de 2,9 mg et une limite de concentration de 290 ppm [30].

    L’exposition des travailleurs et l’environnement. La toxicité de l’hexane est réelle. Elle concerne surtout l’inhalation chronique en milieu professionnel, qui peut provoquer une neuropathie périphérique, allant jusqu’à la paralysie dans les cas sévères [33]. C’est une objection légitime, mais elle porte sur les conditions de production, non sur le risque pour le patient.

    L’efficacité de l’extrait. C’est une question pharmacologique, indépendante des deux précédentes.

    Rejeter un extrait à cause d’une substance qui n’y est plus suit une logique décrite en psychologie sous le nom de loi de contagion : « une fois en contact, toujours en contact ». Dans l’expérience classique de Rozin et de ses collègues, des participants refusent de boire un jus dans lequel un cafard stérilisé a été brièvement trempé [31]. Le produit est jugé sur l’histoire de ses contacts, non sur sa composition.

    Cette méfiance n’est pas absurde. Le consommateur ne peut pas mesurer lui-même les résidus : faute d’accès au produit, il juge le procédé. Mais elle se trompe de cible. Ce qui protège, c’est le contrôle des résidus et la traçabilité, non le nom du solvant. Une mention « sans hexane » ne garantit ni la qualité ni l’efficacité : les extraits au CO2 et à l’éthanol testés dans STEP et CAMUS ne faisaient pas mieux que le placebo.

    Une réserve s’impose. Rien ne démontre que le solvant explique à lui seul la différence. L’essentiel des données favorables porte sur un seul produit et sur des essais liés à son fabricant. Deux hypothèses restent indissociables : l’extrait à l’hexane a la bonne composition, ou il est simplement celui qui a bénéficié du programme d’essais le plus cohérent.

    En pratique

    Consulter d’abord. Toucher rectal, dosage du PSA, analyse d’urine : les mêmes symptômes peuvent avoir d’autres causes. Du sang dans les urines, de la fièvre, des douleurs ou une impossibilité d’uriner imposent une consultation sans délai.

    Vérifier ses médicaments. Certains antihistaminiques, les décongestionnants contre le rhume, les médicaments anticholinergiques et les diurétiques peuvent provoquer ou aggraver des troubles urinaires.

    Agir sur les habitudes. Tenir pendant trois jours un calendrier de ses mictions, limiter les boissons dans les deux heures avant le coucher, réduire café et alcool en soirée. Des ronflements importants justifient d’évoquer une apnée du sommeil.

    La graine de courge. Comme aliment, elle est sans danger et intéressante sur le plan nutritionnel. Il ne faut pas en attendre un traitement. Mieux vaut bien la mâcher ; le trempage peut aider pour le zinc, pas pour la prostate, et des graines trempées doivent être séchées ou conservées au frais.

    Essayer une plante. La racine d’ortie et le palmier de Floride sont très bien tolérés, et le choix d’en prendre appartient à chacun. La mieux documentée est l’extrait de palmier de Floride à l’hexane, à 320 mg par jour, pour un effet modeste. La démarche raisonnable : un examen médical préalable, des attentes réalistes, et un test personnel avec un calendrier de mictions avant de commencer puis après deux ou trois mois. Si rien ne change sur le papier, il est inutile de continuer.

    Ce qu’il faut retenir

    NiveauÉnoncé
    DémontréL’extrait de graine de courge ne modifie ni le volume prostatique, ni le débit, ni le résidu
    DémontréL’effet de l’extrait sur les symptômes, s’il existe, est inférieur au seuil perceptible
    DémontréPrès d’un homme sur deux s’améliore sous placebo en un an
    PlausibleLes stérols de la graine interfèrent avec l’action des androgènes (laboratoire)
    PlausibleLa mastication conditionne l’absorption des lipides de la graine (par analogie avec l’amande)
    HypothèseLa graine entière aurait un effet propre que l’extrait n’a pas
    HypothèseLa courge agirait sur la vessie plutôt que sur la prostate

    Références

    1. Berry SJ, Coffey DS, Walsh PC, Ewing LL. The development of human benign prostatic hyperplasia with age. J Urol. 1984;132(3):474-479. doi:10.1016/s0022-5347(17)49698-4
    2. Walsh PC, Hutchins GM, Ewing LL. Tissue content of dihydrotestosterone in human prostatic hyperplasia is not supranormal. J Clin Invest. 1983;72(5):1772-1777. doi:10.1172/JCI111137
    3. NHS Specialist Pharmacy Service. 5α-reductase inhibitors (benign prostate hyperplasia) monitoring. sps.nhs.uk
    4. Barry MJ et coll. Benign prostatic hyperplasia specific health status measures in clinical research: how much change in the American Urological Association symptom index and the benign prostatic hyperplasia impact index is perceptible to patients? J Urol. 1995;154(5):1770-1774. doi:10.1016/S0022-5347(01)66780-6
    5. Bach D. Placebokontrollierte Langzeittherapiestudie mit Kürbissamenextrakt bei BPH-bedingten Miktionsbeschwerden. Urologe B. 2000;40:437-443. doi:10.1007/s001310050432 ; erratum Urologe B. 2001;41:42. doi:10.1007/s001310050473
    6. Vahlensieck W et coll. Effects of pumpkin seed in men with lower urinary tract symptoms due to benign prostatic hyperplasia in the one-year, randomized, placebo-controlled GRANU study. Urol Int. 2015;94(3):286-295. doi:10.1159/000362903
    7. Vahlensieck W, Heim S, Patz B, Sahin K. Beneficial effects of pumpkin seed soft extract on lower urinary tract symptoms and quality of life in men with benign prostatic hyperplasia: a meta-analysis of two randomized, placebo-controlled trials over 12 months. Clin Phytosci. 2022;8:13. doi:10.1186/s40816-022-00345-0
    8. Hong H, Kim CS, Maeng S. Effects of pumpkin seed oil and saw palmetto oil in Korean men with symptomatic benign prostatic hyperplasia. Nutr Res Pract. 2009;3(4):323-327. doi:10.4162/nrp.2009.3.4.323
    9. Zerafatjou N et coll. Pumpkin seed oil (Cucurbita pepo) versus tamsulosin for benign prostatic hyperplasia symptom relief: a single-blind randomized clinical trial. BMC Urol. 2021;21:147. doi:10.1186/s12894-021-00910-8
    10. Ávila CJA, García MFM, Rodríguez VEC, Peña VA. Effectiveness of Cucurbita pepo in the prostatic hyperplasia treatment. Systematic review and meta-analysis. MediSur. 2021;19(1):157-165.
    11. EMA/HMPC. Assessment report on Cucurbita pepo L., semen. EMA/HMPC/136022/2010. 2012.
    12. European Association of Urology. Guidelines on the Management of Non-Neurogenic Male Lower Urinary Tract Symptoms. Mise à jour mars 2026.
    13. Nishimura M, Ohkawara T, Sato H, Takeda H, Nishihira J. Pumpkin seed oil extracted from Cucurbita maxima improves urinary disorder in human overactive bladder. J Tradit Complement Med. 2014;4(1):72-74. doi:10.4103/2225-4110.124355
    14. ClinicalTrials.gov, NCT06944392. Evaluating Pumpkin Seed Oil Extract Supplementation on Bladder Function (Northwestern University).
    15. Eredics K, Madersbacher S, Schauer I. A relevant midterm (12 months) placebo effect on lower urinary tract symptoms and maximum flow rate in male lower urinary tract symptoms and benign prostatic hyperplasia: a meta-analysis. Urology. 2017;106:160-166. doi:10.1016/j.urology.2017.05.011
    16. Liang J, Han BZ, Nout MJR, Hamer RJ. Effects of soaking, germination and fermentation on phytic acid, total and in vitro soluble zinc in brown rice. Food Chem. 2008. doi:10.1016/j.foodchem.2008.02.064
    17. Leitzmann MF et coll. Zinc supplement use and risk of prostate cancer. J Natl Cancer Inst. 2003;95(13):1004-1007. doi:10.1093/jnci/95.13.1004
    18. Ellis PR et coll. Role of cell walls in the bioaccessibility of lipids in almond seeds. Am J Clin Nutr. 2004;80(3):604-613. doi:10.1093/ajcn/80.3.604
    19. Grundy MML et coll. Effect of mastication on lipid bioaccessibility of almonds in a randomized human study and its implications for digestion kinetics, metabolizable energy, and postprandial lipemia. Am J Clin Nutr. 2015;101(1):25-33. doi:10.3945/ajcn.114.088328
    20. Franco JVA et coll. Serenoa repens for the treatment of lower urinary tract symptoms due to benign prostatic enlargement. Cochrane Database Syst Rev. 2023;6:CD001423. doi:10.1002/14651858.CD001423.pub4
    21. Bent S et coll. Saw palmetto for benign prostatic hyperplasia. N Engl J Med. 2006;354(6):557-566. doi:10.1056/NEJMoa053085
    22. Barry MJ et coll. Effect of increasing doses of saw palmetto extract on lower urinary tract symptoms: a randomized trial. JAMA. 2011;306(12):1344-1351. doi:10.1001/jama.2011.1364
    23. Hryb DJ, Khan MS, Romas NA, Rosner W. The effect of extracts of the roots of the stinging nettle (Urtica dioica) on the interaction of SHBG with its receptor on human prostatic membranes. Planta Med. 1995;61(1):31-32. doi:10.1055/s-2006-957993
    24. Schöttner M, Gansser D, Spiteller G. Lignans from the roots of Urtica dioica and their metabolites bind to human sex hormone binding globulin (SHBG). Planta Med. 1997;63(6):529-532. doi:10.1055/s-2006-957756
    25. Schneider T, Rübben H. Brennesseltrockenextrakt (Bazoton-uno) in der Langzeittherapie des benignen Prostatasyndroms (BPS). Urologe A. 2004;43(3):302-306. doi:10.1007/s00120-004-0532-7
    26. Safarinejad MR. Urtica dioica for treatment of benign prostatic hyperplasia: a prospective, randomized, double-blind, placebo-controlled, crossover study. J Herb Pharmacother. 2005;5(4):1-11. doi:10.1300/J157v05n04_01
    27. Retraction Watch. Urologist blames Big Pharma as concerns mount over his research. 20 janvier 2023.
    28. Lopatkin N et coll. Long-term efficacy and safety of a combination of sabal and urtica extract for lower urinary tract symptoms: a placebo-controlled, double-blind, multicenter trial. World J Urol. 2005;23(2):139-146. doi:10.1007/s00345-005-0501-9
    29. Vidal. HBP : arrêt de commercialisation de TADENAN en juillet 2022.
    30. ICH. Q3C Impurities: Guideline for Residual Solvents (tableau des solvants de classe 2).
    31. Rozin P, Millman L, Nemeroff C. Operation of the laws of sympathetic magic in disgust and other domains. J Pers Soc Psychol. 1986;50(4):703-712.
    32. USDA FoodData Central. Seeds, pumpkin and squash seed kernels, dried (FDC 170556) ; whole, roasted (FDC 170188).
    33. ATSDR. Toxicological Profile for n-Hexane. Agency for Toxic Substances and Disease Registry.
    34. Chrubasik JE, Roufogalis BD, Wagner H, Chrubasik S. A comprehensive review on the stinging nettle effect and efficacy profiles. Part II: urticae radix. Phytomedicine. 2007;14(7-8):568-579. doi:10.1016/j.phymed.2007.03.014

    Transparence IA : Article mise en forme par l’IA à partir de mon brouillon et de mes notes Obsidian
  • Le thym qui change de chimie avec le climat

    Une même espèce, six huiles essentielles différentes. Dans une cuvette de garrigue près de Montpellier, la répartition de ces six « thyms » est suivie depuis cinquante ans. Elle a changé. Aucune plante n’a modifié sa chimie : c’est le climat qui a cessé de faire le tri.

    Une espèce, six huiles essentielles

    Le thym commun, Thymus vulgaris, est l’une des plantes aromatiques les plus étudiées au monde. Son huile essentielle est réputée pour le thymol, puissant antiseptique. Pourtant, dans le sud de la France, une bonne partie des pieds sauvages n’en contiennent presque pas.

    Dans les années 1960 et 1970, les pharmaciens montpelliérains Roger Granger et Jacques Passet analysent des centaines de pieds sauvages et décrivent ce qu’ils appellent des « races chimiques » [1]. Six formes sont identifiées, chacune dominée par une molécule différente : le thymol et le carvacrol, deux phénols, et quatre molécules non phénoliques, le géraniol, l’α-terpinéol, le thujanol (hydrate de sabinène) et le linalol. Visuellement, rien ne les distingue. Au nez et à l’analyse, ce sont presque des plantes différentes.

    Ces formes portent aujourd’hui le nom de chémotypes. La notion vient de la recherche en chimie et en botanique, pas de l’aromathérapie. Dans le commerce, les huiles de thym se vendaient alors sous des appellations comme « thym rouge » ou « thym blanc », qui renseignaient sur l’aspect ou le traitement de l’huile, pas sur sa molécule majoritaire. À partir des années 1970, Pierre Franchomme a milité pour que le chémotype figure systématiquement sur les flacons destinés à un usage thérapeutique. La mention « CT » ou « ct. » s’est imposée depuis.

    Un chémotype est un génotype, pas un terroir

    Une confusion fréquente consiste à voir dans le chémotype un simple effet du sol ou de l’ensoleillement. Pour le thym, les travaux de génétique menés au CNRS de Montpellier par Philippe Vernet, Pierre-Henri Gouyon et leurs collègues ont tranché dès les années 1970-1980 : la nature de la molécule majoritaire est contrôlée par une série de gènes [2, 3]. Un pied de thym ne change pas de chémotype au cours de sa vie, quel que soit le climat qu’il traverse.

    Le biotope joue pourtant un rôle réel, mais à un autre niveau. Au sein d’un même chémotype, la teneur en huile et les proportions des molécules varient avec la saison et le milieu. Dans une étude sur des thyms sauvages de Provence, la plante produit ainsi un maximum d’huile et de phénols en mai, à la floraison, alors qu’en décembre leur huile est plus riche en précurseurs (γ-terpinène, p-cymène) qu’en thymol [4].

    La distinction est simple à retenir :

    • le génotype fixe le « quoi » : quelle molécule domine (variation qualitative, discrète) ;
    • l’environnement règle le « combien » : quelle teneur, quel profil secondaire (variation quantitative, continue).

    La mosaïque de Saint-Martin-de-Londres

    Au nord de Montpellier, le bassin de Saint-Martin-de-Londres a été cartographié au 1/25 000 chémotype par chémotype dès 1977 [5]. La répartition n’a rien d’aléatoire. Les chémotypes phénoliques occupent les coteaux caillouteux, chauds et secs. Les non phénoliques dominent dans la cuvette centrale, aux sols profonds, où l’air froid, plus lourd, descend la nuit le long des pentes et s’accumule, si bien qu’il y gèle plus tôt et plus fort en hiver. Sur seulement 3 à 5 kilomètres, on passe de populations entièrement phénoliques à des populations entièrement non phénoliques [6].

    L’explication tient dans un compromis. Des expériences de transplantation réciproque, menées par l’équipe de John Thompson (CEFE-CNRS), ont montré que les chémotypes qui survivent le mieux à une sécheresse estivale intense sont aussi ceux qui résistent le moins bien à un gel violent en début d’hiver, et inversement [7]. Les phénoliques tolèrent la sécheresse mais craignent le gel ; les non phénoliques supportent le gel mais souffrent de la sécheresse.

    Un point de méthode est essentiel : ce ne sont pas les moyennes climatiques qui sélectionnent, mais les événements extrêmes. Un hiver ordinaire ne tue presque personne. Un gel exceptionnel, lui, peut éliminer en une nuit les pieds sensibles d’une population entière.

    Le climat n’est d’ailleurs pas la seule pression en jeu. Les monoterpènes du thym orientent aussi le comportement des herbivores : l’escargot petit-gris préfère nettement les thyms à linalol, et des escargots nourris exclusivement de carvacrol perdent du poids [8]. Ils modifient enfin le sol sous la plante et la germination des espèces voisines [22], certaines graminées étant même localement adaptées au chémotype qui les entoure [9].

    Quarante ans plus tard, la carte a bougé

    En 2009 et 2010, l’équipe de John Thompson est retournée échantillonner 36 populations le long de six transects, pour les comparer aux relevés du début des années 1970. L’étude, publiée dans PNAS en 2013, met en évidence un déplacement net [6] :

    • le nombre de populations où l’on détecte le chémotype thymol passe de 20 à 30 ;
    • pour le carvacrol, de 16 à 22 ;
    • dans les huit populations initialement non phénoliques dont la composition a changé, le changement correspond chaque fois à l’arrivée du chémotype thymol.

    Le climat de la cuvette, lui, a changé dans le même sens. Les épisodes de gel sévère (sous –15 °C) sont devenus nettement plus rares entre 1965 et 2010, et au moment de l’étude, le dernier gel extrême capable de modifier la composition des populations remontait à vingt-cinq ans [6, 10]. Selon John Thompson, les nuits les plus froides de la cuvette descendaient vers –20 °C dans les années 1950 ; elles atteignent aujourd’hui à peine –10 °C [11].

    Le mécanisme est celui que les biologistes appellent une sélection relâchée. Des génotypes phénoliques, présents à faible fréquence ou apportés par le pollen et les graines des coteaux voisins, étaient régulièrement éliminés par les grands gels. Ce filtre a disparu, et les phénoliques s’installent. Aucune plante n’a « changé de chimie » : c’est la proportion des chémotypes dans la population qui se déplace. Les auteurs y voient un exemple original d’évolution observée en temps réel, à l’échelle de quelques décennies et d’un paysage local [6].

    Et l’été ? Une hypothèse en cours d’examen

    L’histoire ne s’arrête peut-être pas là. Un travail de la même équipe, diffusé en 2026 sous forme de prépublication (donc pas encore évalué par des pairs), apporte un résultat inattendu [12]. L’écotype phénolique augmente bien ses limites de tolérance à la chaleur après acclimatation, mais il subit malgré cela une mortalité accrue dans ses propres habitats chauds. Les auteurs suggèrent que les températures estivales récentes dépassent peut-être déjà ses seuils physiologiques.

    Si ce résultat se confirme, le filtre climatique ne se contenterait pas de s’ouvrir côté froid : il se refermerait aussi côté chaud. À ce stade, il s’agit d’une hypothèse, à suivre.

    Reste une limite sur le lien entre molécule et résistance. Le compromis gel–sécheresse est solidement démontré sur le terrain, mais les mécanismes physiologiques qui relient la chimie des monoterpènes à la tolérance au froid ou à la chaleur restent encore mal compris [12]. La corrélation est établie ; la causalité moléculaire, pas encore.

    Ce que cela change pour la pratique

    Même nom, autre pharmacologie

    Pour l’utilisateur d’huiles essentielles, la conséquence la plus directe est qu’un flacon étiqueté « thym » ne dit presque rien tant que le chémotype n’est pas précisé. Le cas de la douleur l’illustre bien.

    Le thymol et le carvacrol agissent sur des canaux ioniques de la famille TRP, ceux-là mêmes qui codent les sensations de chaleur et d’irritation. Ils activent et sensibilisent TRPV3, un canal sensible à la chaleur très présent dans la peau, la langue et le nez, ce qui explique la sensation de chaleur du thym et de l’origan [13]. Ils activent aussi TRPA1, le récepteur des composés piquants, puis le désensibilisent [13, 14]. Le thymol est en outre un modulateur allostérique positif du récepteur GABA-A [23]. Ce profil, irritant puis désensibilisant, relève de la logique de la contre-irritation. Il est cohérent avec le caractère agressif de ces huiles pour la peau, et ces molécules sont par ailleurs décrites comme sensibilisants cutanés [13].

    Le linalol suit une tout autre voie. Chez l’animal, il réduit la réponse douloureuse et l’hyperalgésie inflammatoire par des mécanismes multiples : systèmes cholinergique, opioïde et dopaminergique, récepteurs de l’adénosine, blocage des récepteurs NMDA du glutamate, activité anesthésique locale, réduction de la production de monoxyde d’azote [15, 16, 24]. Son profil cutané est par ailleurs beaucoup plus doux.

    Deux thyms, donc deux logiques : l’une repose sur la stimulation puis l’épuisement d’un signal, l’autre sur l’apaisement de la transmission douloureuse. Une précision s’impose : ces mécanismes sont établis pour l’essentiel in vitro et chez l’animal, à des doses qui ne se transposent pas directement à l’usage humain.

    Ces mécanismes, et la manière de choisir une molécule selon le type de douleur (nociceptive, neuropathique, nociplastique), sont détaillés dans la formation « Prise en charge de la douleur en phyto-aromathérapie ».

    Sauvage ou cultivé : deux stabilités différentes

    La génétique des chémotypes a une conséquence pratique peu connue. En autofécondation, un thym à thymol ne donne que des descendants à thymol, alors qu’un thym à linalol peut donner des descendants à carvacrol ou à thymol [3]. Et le thym se reproduit surtout par croisement : une graine récoltée sur un pied donné porte aussi les gènes du pollen reçu. La multiplication par graines ne garantit donc pas le chémotype ; seule la multiplication végétative (bouturage, clonage) le fixe.

    La cueillette sauvage pose le problème inverse : elle prélève une population, pas un individu. Le Handbook of Essential Oils rapporte le cas d’une huile de serpolet (Thymus serpyllum) sauvage de Turquie dont l’analyse ne correspondait à rien d’attendu : trop peu de thymol et de carvacrol, trop de linalol et de géraniol. Les cueilleurs avaient récolté tout ce qui ressemblait à du thym, sans pouvoir distinguer les chémotypes à l’œil [17]. Et comme le montre Saint-Martin-de-Londres, la composition d’une population sauvage peut elle-même dériver en quelques décennies.

    L’étiquette ne suffit pas, le chromatogramme si

    Seule l’analyse du lot, par chromatographie en phase gazeuse couplée à la spectrométrie de masse, confirme le chémotype réel d’une huile. C’est aussi par l’analyse que l’on détecte les huiles reconstituées. Le thym y est exposé à double titre. L’huile à thymol est signalée de longue date comme coupée d’origan ou de fractions d’autres huiles, ou renforcée en thymol de synthèse [25]. L’huile à linalol, rare et chère, constitue logiquement une cible pour l’ajout de linalol synthétique. Certaines de ces fraudes ne sont détectables qu’avec des méthodes avancées : le dosage du carbone 14 distingue par exemple un thymol pétrochimique d’un thymol végétal [18].

    La façon dont se lisent ces analyses, et ce qu’elles révèlent des pratiques de la filière, est l’objet du webinaire « Du champ au flacon : qualité, sourcing et adultération en phyto-aromathérapie », disponible en replay.

    Une huile essentielle est une histoire

    Une huile essentielle est souvent présentée comme une fiche figée : une plante, une composition, des propriétés. Le thym de Saint-Martin-de-Londres montre autre chose. Sa chimie est le produit d’une histoire de sélection, où le gel, la sécheresse, les escargots et les plantes voisines ont chacun pesé. Cette histoire ne s’est pas arrêtée : elle se poursuit sous nos yeux, à l’échelle d’une vie humaine. Pour le praticien, la leçon est double : nommer le chémotype n’est pas un luxe, et la composition d’une huile se vérifie plutôt qu’elle ne se suppose.

    Pour aller plus loin : la génétique des chémotypes Les six chémotypes forment une série épistatique : chacun domine ceux qui viennent après lui dans l’ordre géraniol > α-terpinéol > thujanol > linalol > carvacrol > thymol [3, 19]. Cet ordre suit globalement la chaîne de biosynthèse : les phénols sont produits en bout de chaîne, à partir du γ-terpinène et du p-cymène. Conséquence : en autofécondation, un thym à thymol, situé en bas de la série et porteur des seuls allèles récessifs, ne produit que des descendants à thymol, tandis qu’un thym à géraniol peut engendrer une grande diversité de chémotypes [3]. Les huiles phénoliques sont aussi, en moyenne, moins « pures » : elles contiennent davantage de leurs précurseurs que les huiles non phénoliques ne contiennent de molécules secondaires [20]. Des travaux récents de biologie moléculaire suggèrent qu’une partie du contrôle passe par la méthylation de l’ADN dans les régions promotrices de gènes de terpène-synthases, c’est-à-dire par un mécanisme épigénétique [19]. Ce niveau de régulation reste à confirmer. Enfin, la liste des six n’est pas close : un septième chémotype a été décrit dans le sud de la France en 2009 [21], et d’autres formes existent hors de cette région.
    Ce qui est démontré, plausible ou hypothétique Démontré : l’existence de chémotypes génétiquement déterminés et stables au cours de la vie de la plante ; la répartition liée au gel et à la sécheresse ; l’augmentation des chémotypes phénoliques entre 1970 et 2010 parallèlement au recul des gels extrêmes ; l’action du thymol et du carvacrol sur TRPV3 et TRPA1 (in vitro). Plausible : le rôle du réchauffement global dans le recul des gels locaux (les auteurs restent prudents) ; la pertinence clinique, chez l’humain, des effets antalgiques du linalol observés chez l’animal. Hypothèse : une mortalité estivale accrue des chémotypes phénoliques (prépublication non évaluée) ; la régulation épigénétique des chémotypes ; le mécanisme physiologique liant la chimie à la tolérance au froid.

    Références

    [1] Granger R., Passet J. (1973). Thymus vulgaris spontané de France : races chimiques et chemotaxonomie. Phytochemistry 12 : 1683–1691.

    [2] Vernet P., Gouyon P.-H., Valdeyron G. (1986). Genetic control of the oil content in Thymus vulgaris L.: a case of polymorphism in a biosynthetic chain. Genetica 69 : 227–231. doi:10.1007/BF00133526

    [3] Gouyon P.-H., Vernet P., Guillerm J.-L., Valdeyron G. (1986). Polymorphisms and environment: the adaptive value of the oil polymorphisms in Thymus vulgaris L. Heredity 57 : 59–66. doi:10.1038/hdy.1986.87

    [4] Kaloustian J. et al. (2005). Southern French thyme oils: chromatographic study of chemotypes. Journal of the Science of Food and Agriculture 85 : 2437–2444. doi:10.1002/jsfa.2274

    [5] Vernet P., Guillerm J.-L., Gouyon P.-H. (1977). Le polymorphisme chimique de Thymus vulgaris L. II. Carte à l’échelle 1/25 000 des formes chimiques dans la région de Saint-Martin-de-Londres. Oecologia Plantarum 12 : 181–194.

    [6] Thompson J. et al. (2013). Evolution of a genetic polymorphism with climate change in a Mediterranean landscape. PNAS 110 : 2893–2897. doi:10.1073/pnas.1215833110

    [7] Thompson J. D. et al. (2007). Ongoing adaptation to Mediterranean climate extremes in a chemically polymorphic plant. Ecological Monographs 77 : 421–439. doi:10.1890/06-1973.1

    [8] Linhart Y. B., Thompson J. D. (1995). Terpene-based selective herbivory by Helix aspersa (Mollusca) on Thymus vulgaris (Labiatae). Oecologia 102 : 126–132. doi:10.1007/BF00333320

    [9] Ehlers B. K., Thompson J. D. (2004). Do co-occurring plant species adapt to one another? The response of Bromus erectus to the presence of different Thymus vulgaris chemotypes. Oecologia 141 : 511–518.

    [10] Franks S. J., Weber J. J., Aitken S. N. (2014). Evolutionary and plastic responses to climate change in terrestrial plant populations. Evolutionary Applications 7 : 123–139 (figure 2, données de Thompson et al. 2013). doi:10.1111/eva.12112

    [11] CNRS / Techno-Science (2013). Comment le thym s’adapte au changement climatique. techno-science.net

    [12] Faber A. H., Thompson J. D., Gauthier P., Ehlers B. K. (2026). The scent of survival in a warming world: how monoterpenes drive thermal adaptation in thyme. Prépublication EcoEvoRxiv, non évaluée par des pairs. ecoevorxiv.org

    [13] Xu H. et al. (2006). Oregano, thyme and clove-derived flavors and skin sensitizers activate specific TRP channels. Nature Neuroscience 9 : 628–635. doi:10.1038/nn1692

    [14] Lee S. P. et al. (2008). Thymol and related alkyl phenols activate the hTRPA1 channel. British Journal of Pharmacology 153 : 1739–1749. doi:10.1038/bjp.2008.85

    [15] Peana A. T. et al. (2004). Profile of spinal and supra-spinal antinociception of (–)-linalool. European Journal of Pharmacology 485 : 165–174. doi:10.1016/j.ejphar.2003.11.066

    [16] Peana A. T. et al. (2006). Involvement of adenosine A1 and A2A receptors in (–)-linalool-induced antinociception. Life Sciences 78 : 2471–2474. doi:10.1016/j.lfs.2005.10.025

    [17] Başer K. H. C., Buchbauer G. (dir.) (2020). Handbook of Essential Oils: Science, Technology, and Applications, 3e éd., chapitre « Adulteration of Essential Oils ». CRC Press.

    [18] Beta Analytic. Essential oil testing by carbon-14 analysis. betalabservices.com

    [19] Schimmel J. (2014). Molekulare Mechanismen der Ausprägung von Chemotypen in Thymus vulgaris. Thèse de doctorat, Université Martin-Luther de Halle-Wittenberg. doi:10.25673/1293

    [20] Thompson J. D. et al. (2003). Qualitative and quantitative variation in monoterpene co-occurrence and composition in the essential oil of Thymus vulgaris chemotypes. Journal of Chemical Ecology 29 : 859–880. doi:10.1023/A:1022927615442

    [21] Keefover-Ring K., Thompson J. D., Linhart Y. B. (2009). Beyond six scents: defining a seventh Thymus vulgaris chemotype new to southern France by ethanol extraction. Flavour and Fragrance Journal 24 : 117–122.

    [22] Linhart Y. B., Gauthier P., Keefover-Ring K., Thompson J. D. (2015). Variable phytotoxic effects of Thymus vulgaris (Lamiaceae) terpenes on associated species. International Journal of Plant Sciences 176 : 20–30. doi:10.1086/678772

    [23] Priestley C. M., Williamson E. M., Wafford K. A., Sattelle D. B. (2003). Thymol, a constituent of thyme essential oil, is a positive allosteric modulator of human GABAA receptors and a homo-oligomeric GABA receptor from Drosophila melanogaster. British Journal of Pharmacology 140 : 1363–1372. doi:10.1038/sj.bjp.0705542

    [24] Peana A. T. et al. (2006). (–)-Linalool inhibits in vitro NO formation: probable involvement in the antinociceptive activity of this monoterpene compound. Life Sciences 78 : 719–723. doi:10.1016/j.lfs.2005.05.065

    [25] Arctander S. (1960). Perfume and Flavor Materials of Natural Origin. Elizabeth (NJ) : auto-édition. Cité d’après Battaglia S., monographie « Thyme ». salvatorebattaglia.com.au

  • Palmarosa sous les bras : déodorant, anti-transpirant ? Ce que dit la science

    L’huile essentielle de palmarosa (Cymbopogon martinii) est, de loin, la plus citée des « déodorants naturels ». Avant de juger cet usage, il faut corriger une confusion de départ qui fausse tout le reste : la transpiration et l’odeur ne sont pas le même problème, et ne se combattent pas au même endroit. À sa sortie, la sueur est quasiment inodore. L’odeur n’est pas une propriété de la transpiration : c’est le produit d’une transformation microbienne en aval. Transpirer est un problème de débit ; sentir est un problème de chimie de surface. Un anti-transpirant agit sur le premier, un déodorant sur le second. Toute la suite découle de cette distinction.

    1. Physiologie : transpirer et sentir, deux mécanismes distincts

    Trois types de glandes, trois fonctions

    La peau porte trois familles de glandes qu’il faut distinguer, car on les confond en permanence dans le discours commercial.

    Les glandes eccrines. Réparties sur presque tout le corps, très denses aux paumes, aux plantes et aux aisselles, elles sécrètent un liquide essentiellement aqueux : eau, électrolytes (surtout du chlorure de sodium), avec des traces de lactate, d’urée, d’acides aminés et d’ammoniac. C’est l’actionneur de la thermorégulation : l’évaporation de cette eau refroidit le corps. La sécrétion est inodore au départ. Particularité anatomique essentielle : ces glandes sont innervées par le système sympathique, mais via un neurotransmetteur cholinergique, l’acétylcholine, agissant sur des récepteurs muscariniques M3. C’est une bizarrerie (nerf sympathique, chimie « para-like »), et c’est le levier de toute la pharmacologie anti-transpirante.

    Les glandes apocrines. Localisées aux aisselles, aux aréoles et à la zone génitale, elles ne débouchent pas directement sur la peau mais dans le follicule pileux. Elles se développent à la puberté et sont androgéno-dépendantes. Elles sécrètent un liquide visqueux, riche en lipides, protéines et stéroïdes, également inodore à l’émission, mais c’est lui qui fournit les précurseurs de l’odeur. Elles répondent surtout à une stimulation adrénergique (catécholamines), donc au stress et à l’émotion : d’où la sueur « de trac », indépendante de la chaleur.

    Les glandes sébacées. Annexées au follicule pileux, elles sécrètent le sébum (lipides). Avec la sueur eccrine, le sébum forme à la surface le film hydrolipidique — une émulsion eau/graisse. Les lipides du sébum peuvent constituer un substrat secondaire pour les bactéries (lipolyse en acides gras libres), mais ils ne sont pas la source principale de l’odeur axillaire caractéristique. (Un quatrième type, apoeccrine, décrit dans l’aisselle, reste de poids quantitatif discuté.)

    La genèse de l’odeur : un substrat, un opérateur, une sortie

    La sueur apporte le substrat ; ce sont les bactéries de l’aisselle, surtout Corynebacterium et Staphylococcus, qui fabriquent l’odeur, en clivant des molécules précurseurs inodores en composés volatils. Trois familles d’odorants sont bien caractérisées.

    • Les acides gras volatils — notamment le 3-méthyl-2-hexénoïque (odeur « de bouc ») et le 3-hydroxy-3-méthylhexanoïque (odeur « de cumin ») — libérés surtout par des Corynebacterium à partir de conjugués à la glutamine, via une enzyme dédiée (la Nα-acyl-glutamine aminoacylase).
    • Les thioalcools — surtout le 3-méthyl-3-sulfanylhexan-1-ol (3M3SH, odeur d’oignon/soufre) — libérés par un petit groupe de staphylocoques (Staphylococcus hominis au premier chef). Présents à l’état de traces, ils sont extraordinairement puissants : il suffirait de quelques gouttes dans une piscine olympique pour les détecter.
    • Les stéroïdes 16-androsténiques (androsténone, androsténol), à note musquée.

    Un point de rigueur : la sécrétion du précurseur du 3M3SH dépend d’un transporteur, ABCC11. Un polymorphisme fréquent de ce gène (allèle inactif, majoritaire en Asie de l’Est) réduit drastiquement la sécrétion du précurseur ; les porteurs n’ont quasiment pas d’odeur d’aisselle, et le même variant commande le type de cérumen (sec plutôt qu’humide). Détail crucial pour la suite : ce gène ne bloque pas la transpiration. Il agit sur l’alimentation de la voie odeur, en amont des bactéries ; la sueur eccrine thermorégulatrice, elle, reste entière. La preuve, à l’échelle d’une population, que l’on peut supprimer l’odeur sans toucher au débit.

    La grille des points d’action

    En remontant la chaîne, on obtient les cibles possibles : le débit eccrine (on le bouche ou on inhibe la sécrétion : sels d’aluminium, anticholinergiques, toxine botulique) ; la charge bactérienne (on réduit l’opérateur : antimicrobiens) ; les enzymes et précurseurs (on bloque la biotransformation : inhibiteurs ciblés, domaine de recherche) ; l’odorant déjà formé (on le masque ou on le neutralise : parfums). Un anti-transpirant vise la première ligne ; un déodorant vise les trois autres. Une huile essentielle antibactérienne et odorante ne peut plausiblement agir que sur la flore et sur le masquage — jamais sur le canal eccrine ni sur sa commande nerveuse.

    2. Le palmarosa à l’épreuve des faits

    « Anti-transpirant » : une cible que le produit ne touche pas

    Réduire la sueur suppose d’agir sur l’actionneur eccrine : boucher le canal (sels d’aluminium, qui forment un bouchon protéique) ou couper la commande cholinergique (anticholinergiques, toxine botulique). Le palmarosa n’a aucun mécanisme pour l’un ou l’autre. L’affirmation « anti-transpirant » n’est donc pas tant fausse que mal posée : elle décrit une action sur une cible hors d’atteinte.

    Plus précisément encore : l’action nerveuse la mieux caractérisée du géraniol va dans le sens contraire. In vitro, le géraniol inhibe l’acétylcholinestérase, l’enzyme qui dégrade l’acétylcholine. Inhiber cette enzyme prolonge le signal cholinergique, c’est-à-dire précisément celui qui ordonne à la glande de transpirer (l’intoxication par les inhibiteurs d’acétylcholinestérase provoque d’ailleurs une hypersudation). Si le géraniol avait un effet à ce niveau, il irait donc plutôt vers plus de sueur, pas moins. Ces données restent in vitro et à forte concentration ; à dose cutanée, le composé n’atteint pas la jonction neuroglandulaire en quantité active. Mais le constat tient : non seulement l’effet anti-transpirant n’est pas démontré, mais le seul effet nerveux connu pointe dans le mauvais sens.

    « Déodorant » : un effet antibactérien réel, mais mal attribué et peu prouvé en pratique

    L’activité antibactérienne du palmarosa in vitro est démontrée : des concentrations minimales inhibitrices de l’ordre de 300 µg/mL contre les staphylocoques testés, et une activité du géraniol sur plusieurs espèces. Premier accroc, toutefois : l’huile entière inhibe souvent mieux que le géraniol isolé. L’idée « c’est le géraniol qui fait tout » est donc fausse ; ce sont les autres constituants, ensemble, qui comptent aussi. Ce fait est favorable au palmarosa, mais il déplace la question du géraniol vers l’huile, une erreur de réduction (huile = molécule vedette) que l’on retrouvera du côté de la sécurité.

    Reste à savoir si cet effet porte sur les bonnes bactéries et dans les bonnes conditions. La plupart des études testent des pathogènes de laboratoire (Staphylococcus aureus, streptocoques), pas les genres responsables de l’odeur axillaire. Une étude a néanmoins testé le géraniol sur huit bactéries de l’odeur axillaire, dont Staphylococcus hominis, et en a trouvé six sensibles. Mais sous une forme capitale : des nanoparticules à libération prolongée, parce que le géraniol libre est trop volatil pour tenir. Le résultat est in vitro, sans valeur de CMI comparée, et surtout il ne porte pas sur la goutte libre que l’on applique réellement.

    Un biais structurel à garder en tête. Une huile essentielle n’est pas brevetable ; un procédé d’encapsulation l’est. La recherche « sérieuse » se concentre donc sur des systèmes de délivrance, pas sur la goutte brute que les gens utilisent. L’absence d’étude propre sur « géraniol libre sous l’aisselle » n’est pas un hasard et elle n’est ni une preuve d’efficacité, ni une preuve d’inefficacité : c’est un angle mort créé par l’économie du brevet.

    Quant à l’efficacité réelle, in vivo, sous le bras humain : la méthode existe (essais randomisés en demi-aisselle, notation olfactive à l’aveugle) et sert couramment à valider des actifs de synthèse ou des postbiotiques. Le palmarosa n’y est, à ma connaissance, jamais passé. Un détail méthodologique éclaire le problème : dans un de ces essais, un actif a perdu contre le placebo, et la réduction bactérienne observée a été attribuée à l’alcool du véhicule. Or une goutte de palmarosa se pose sur une peau propre, souvent avec de l’alcool dans la recette ou juste après la douche, et l’huile sent bon. Impossible, dans ces conditions, de distinguer une action antibactérienne d’un simple masquage parfumé ou de l’effet du solvant. Un témoignage « je ne sens plus rien » est parfaitement compatible avec un effet antibactérien nul.

    3. Sécurité : le tri au cordeau

    Les mises en garde des fiches ne se valent pas. Certaines sont mieux fondées qu’elles n’en ont l’air, d’autres plus faibles. Le critère décisif est toujours le même : l’effet franchit-il le pont entre la dose/voie testée et l’usage réel ?

    L’allergène : la seule mise en garde qui franchit le pont

    Le géraniol est un allergène cutané à déclaration obligatoire (règlement cosmétique européen CE 1223/2009). Son effet est local : il se joue là où le produit se trouve, à pleine concentration sur la peau, sans avoir besoin d’atteindre un organe lointain. Le pire scénario de sensibilisation est précisément le protocole conseillé par certaines fiches : une goutte pure, sur une zone chaude, humide, souvent rasée. En cosmétique réglementée, le géraniol est plafonné autour de 0,5 à 1 % ; les recettes « maison » préconisent souvent 10 à 100 % de pur, soit dix à cent fois au-dessus de la marge de sécurité que l’industrie s’impose pour cet allergène. Conclusion actionnable : jamais pur, toujours dilué, après test au pli du coude.

    Œstrogénicité : un signal in vitro à forte dose, non confirmé in vivo

    Il existe bien un signal : l’huile de Cymbopogon martinii stimule in vitro la croissance de cellules ER+ et active un rapporteur œstrogénique, à des niveaux comparables à l’œstradiol prémenopausique. Mais ce signal doit être borné. Le géraniol seul n’est œstrogénique qu’à très forte concentration in vitro (proche de la cytotoxicité), et s’est montré négatif in vivo (pas d’hypertrophie utérine chez la souris ovariectomisée). L’ouvrage de référence (Tisserand & Young) juge les preuves insuffisantes pour attribuer aux huiles essentielles une œstrogénicité cliniquement significative, à l’exception de celles riches en trans-anéthol. Surtout, l’absorption cutanée du géraniol est faible (de l’ordre de 3,5 à 7 % sous occlusion), la molécule est volatile et rapidement métabolisée : l’exposition systémique d’une goutte sous le bras reste très en deçà des concentrations où l’effet apparaît. L’alerte œstrogénique systémique ne franchit donc pas le pont dose/voie.

    En pratique, chez une personne sous traitement hormonal ou avec un antécédent de cancer hormono-dépendant, l’abstention reste la bonne conduite, mais au titre de la prudence (bénéfice non prouvé, mécanisme non nul et orienté dans le mauvais sens, coût d’abstention nul), et non parce qu’un danger serait démontré. Par comparaison, les isoflavones de soja (génistéine) montrent qu’un œstrogène exogène faible peut contrarier une hormonothérapie lorsqu’il atteint une concentration active, mais c’est précisément ce que le géraniol topique n’atteint pas. La distinction protège contre deux erreurs symétriques : surjouer un danger non démontré, ou balayer une précaution raisonnable.

    Interaction médicamenteuse (CYP2B6) : réelle in vitro, théorique à dose topique

    Le géraniol est un inhibiteur compétitif du cytochrome CYP2B6 (Ki de l’ordre de 6,7 µM), enzyme qui métabolise plusieurs médicaments (bupropion, cyclophosphamide, éfavirenz, tamoxifène). L’affirmation est donc fondée et traçable, mais elle repose sur des mesures en microsomes hépatiques. À la dose délivrée par voie cutanée, l’interaction reste théorique : la fiche qui l’invoque omet le pont dose/voie.

    Grossesse et effet « utérotonique » : une précaution surinterprétée

    Contrairement à ce qu’affichent de nombreuses fiches françaises, l’ouvrage de référence ne contre-indique pas la palmarosa chez la femme enceinte (sûre diluée, aucune contre-indication connue). Le « tonique utérin / facilite l’accouchement » relève du langage de tradition, pas d’une action oxytocique démontrée. Il y a même une confusion mécanistique : être œstrogénique (liaison aux récepteurs ER) n’est pas être utérotonique (contraction du myomètre) — deux pharmacologies distinctes, empilées sous un vague « agit sur l’utérus ». La contre-indication grossesse est ici un principe de précaution générique habillé d’un mécanisme qu’il n’a pas.

    4. La vraie leçon : d’où ça vient, à quelle dose, prouvé comment

    Mises côte à côte, les promesses et les peurs révèlent un même schéma. Un effet antibactérien de laboratoire devient une promesse de déodorant ; un effet hormonal de laboratoire devient une peur de cancer. Dans les deux cas, le même geste : une observation vraie dans un tube, à forte dose, sortie de son contexte et présentée comme un fait du quotidien. Le bénéfice et le risque sont fabriqués dans la même usine. La seule mise en garde qui survit, l’allergène, survit parce qu’elle ne triche pas sur la dose : son effet est local, là où le produit est réellement.

    D’où une grille applicable bien au-delà du palmarosa. Devant n’importe quelle affirmation, sur une huile, un complément, un remède, qu’elle promette un bénéfice ou agite un risque, trois questions suffisent le plus souvent : d’où vient l’affirmation (source primaire ou fiche recopiée) ; à quelle dose et par quelle voie l’effet a-t-il été observé ; avec quel niveau de preuve (démontré, plausible, simple hypothèse). Une quatrième lentille, plus discrète, complète les trois : qui avait intérêt à ce que l’étude existe, et sous quelle forme (la brevetabilité oriente ce qui est étudié).

    Verdict pratique

    Comme anti-transpirant : non. C’est un contresens, l’huile ne touche pas cette cible, et son seul effet nerveux connu irait dans l’autre sens. Comme déodorant : plausible, mais non prouvé en conditions sérieuses, et une part importante de l’effet ressenti relève probablement du masquage parfumé. Côté sécurité : jamais pur ; prudence réelle pour certaines populations (traitement hormonal, terrain hormono-dépendant) au titre de la précaution ; la peur de la grossesse, elle, est surjouée. Enfin, le bon choix dépend de deux variables personnelles : la raison pour laquelle on l’utilise (si c’est « contre la transpiration », la cible est mauvaise) et sa propre biologie, le gène ABCC11 fait que la question de l’odeur ne se pose même pas pour certains.

    Tableau récapitulatif

    Promesse / mise en gardeCible physiologiqueStatut
    Anti-transpirantDébit eccrineMal posé — cible hors d’atteinte
    Antibactérien in vitroFloreDémontré (non réductible au géraniol)
    Action sur les bactéries de l’odeurCorynebacterium / S. hominisPlausible — une seule étude, forme encapsulée
    Efficacité in vivo sous le brasFlore axillaire réelleNon démontré (confondant alcool / masquage)
    Tenue « toute la journée »—Implausible (molécule volatile)
    Allergène (surtout pur)PeauDémontré, actionnable — jamais pur
    Œstrogénicité / cancer hormonalRécepteurs ERSignal in vitro haute dose ; prudentiel, non démontré à cette dose
    Interaction CYP2B6Métabolisme hépatiqueRéel in vitro ; théorique à dose topique
    Utérotonique / grossesseMyomètreSurinterprété — non contre-indiqué (Tisserand)

    Sources

    Cebollada, Alvarado, Seral, Lopez. (2026). Antibacterial activity of palmarosa (Cymbopogon martini (Roxb.) Will. Watson) essential oil and geraniol against clinical isolates from respiratory, skin, and soft tissue infections. Pharmaceutics, 18(1), Article 39. https://doi.org/10.3390/pharmaceutics18010039

    Iqbal & al. (2021). Exploring the binding pattern of geraniol with acetylcholinesterase through in silico docking, molecular dynamics simulation, and in vitro enzyme inhibition kinetics studies. Cells, 10(12), Article 3533. https://doi.org/10.3390/cells10123533

    Gilpin, S., Hui, X., & Maibach, H. (2010). In vitro human skin penetration of geraniol and citronellol. Dermatitis, 21(1), 41–48. https://doi.org/10.2310/6620.2010.09056

    Howes, M.-J. R., Houghton, P. J., Barlow, D. J., Pocock, V. J., & Milligan, S. R. (2002). Assessment of estrogenic activity in some common essential oil constituents. Journal of Pharmacy and Pharmacology, 54(11), 1521–1528.

    Martin, A., Saathoff, M., Kuhn, F., Max, H., Terstegen, L., & Natsch, A. (2010). A functional ABCC11 allele is essential in the biochemical formation of human axillary odor. Journal of Investigative Dermatology, 130(2), 529–540. https://doi.org/10.1038/jid.2009.254

    Seo, K. A., [liste complète des auteurs à vérifier]. (2008). The monoterpenoids citral and geraniol are moderate inhibitors of CYP2B6 hydroxylase activity. Chemico-Biological Interactions, 174(3).

    Simões, B. M., Kohler, B., Clarke, R. B., Stringer, J., Novak-Frazer, L., Young, K., Rautemaa-Richardson, R., Zucchini, G., Armstrong, A., & Howell, S. J. (2018). Estrogenicity of essential oils is not required to relieve symptoms of urogenital atrophy in breast cancer survivors. Therapeutic Advances in Medical Oncology, 10, Article 1758835918766189. https://doi.org/10.1177/1758835918766189

    Wen Nee & al. Sustained release geraniol nanoparticles inhibit human axillary odor-causing bacteria. Arabian Journal for Science and Engineering. https://doi.org/10.1007/s13369-018-3668-2

    Tisserand, R., & Young, R. (2014). Essential oil safety: A guide for health care professionals (2e éd.). Churchill Livingstone/Elsevier.

    Troccaz, M., Starkenmann, C., Niclass, Y., van de Waal, M., & Clark, A. J. (2004). 3-Methyl-3-sulfanylhexan-1-ol as a major descriptor for the human axilla-sweat odour profile. Chemistry & Biodiversity, 1(7), 1022–1035. https://doi.org/10.1002/cbdv.200490077

    Transparence IA : Article mis en forme avec l’aide de l’IA à partir de mes notes et mon brouillon.

  • Lavande vraie, fine ou officinale ?

    Lavandula vera, Lavandula officinalis, Lavandula angustifolia : trois noms latins pour une même espèce, auxquels s’ajoutent trois noms français. Cette profusion n’a rien d’une négligence de vocabulaire. Elle résulte d’un mécanisme précis, la manière dont la botanique attribue, arbitre et parfois révoque les noms des plantes. Et ce mécanisme a des conséquences très concrètes au moment de choisir une huile essentielle.

    L’intuition courante veut qu’un nom latin décrive la plante. C’est parfois le cas pour l’épithète (angustifolia signifie « à feuilles étroites »), mais ce n’est pas sa fonction. En nomenclature botanique, chaque nom est rattaché à un type nomenclatural, en général un spécimen d’herbier précis, conservé dans une institution. Le nom ne renvoie pas à une idée de la plante : il renvoie à cet échantillon physique, un peu comme une adresse renvoie à un bâtiment et non à sa description (l’analogie a ses limites, mais elle rend compte du principe).

    Deux conséquences en découlent. D’abord, plusieurs noms publiés indépendamment peuvent désigner la même espèce : ce sont des synonymes. Ensuite, décider que deux noms sont synonymes revient à juger que leurs types appartiennent au même taxon. C’est un jugement taxonomique, pas un fait gravé dans le marbre : il peut évoluer, et deux référentiels sérieux peuvent ne pas trancher de la même façon. L’histoire de la lavande illustre les deux points.

    1753 : un nom pour deux plantes

    La nomenclature des plantes à fleurs a un point de départ officiel : le Species Plantarum de Linné, publié en 1753. Linné y nomme Lavandula spica. Le problème apparaît ensuite : les botanistes appliquent ce nom tantôt à la lavande fine, tantôt à la lavande aspic. Pendant près de deux siècles, un même nom circule pour deux espèces distinctes, chacun le comprenant à sa manière.

    Cette ambiguïté a laissé la lavande fine en quête d’un nom propre. Elle en a reçu plusieurs.

    Trois baptêmes indépendants

    En 1768, le botaniste anglais Philip Miller distingue les deux plantes dans la huitième édition de son Gardener’s Dictionary et nomme la lavande fine Lavandula angustifolia, « à feuilles étroites ». L’aspic recevra de son côté le nom de Lavandula latifolia, « à feuilles larges », sous l’autorité de Medikus.

    En 1786, un nom de Chaix, Lavandula officinalis, est publié dans l’ouvrage de Villars consacré à la flore du Dauphiné : la lavande « de l’officine », celle des apothicaires.

    En 1815, Augustin Pyramus de Candolle publie Lavandula vera, « la vraie », dans la troisième édition de la Flore française qu’il cosigne avec Lamarck. Le sens de l’épithète est clair ; l’intention précise de l’auteur l’est moins, et l’opposition à l’aspic n’est ici qu’une interprétation plausible.

    Rien d’anormal dans cette multiplication. À la fin du XVIIIe siècle, aucun registre central ne recense les noms publiés, les ouvrages circulent lentement d’un pays à l’autre, et aucune règle partagée ne dit quel nom doit l’emporter. Chaque botaniste nomme ce qu’il observe, de son côté.

    La règle de priorité : un algorithme d’arbitrage

    La solution vient au XIXe siècle. En 1867, Alphonse de Candolle (le fils d’Augustin Pyramus) rédige les Lois de la nomenclature botanique, ancêtre de l’actuel Code international de nomenclature pour les algues, les champignons et les plantes. Le principe central est la priorité : pour un taxon donné, à un rang donné, le nom correct est le plus ancien nom valablement publié.

    Appliqué à la lavande, le calcul est simple. Miller (1768) précède Chaix (1786) et De Candolle (1815). Le nom correct est donc Lavandula angustifolia Mill. ; L. officinalis et L. vera deviennent des synonymes. L’abréviation « Mill. » n’est pas décorative : elle fait partie du nom et indique à quel acte de publication, donc à quel type, il se rattache.

    Reste le cas de Lavandula spica, antérieur à tous les autres. Son type de référence, désigné bien plus tard dans l’herbier Burser conservé à Uppsala, est rattaché par les botanistes de Kew à la lavande fine. Laissée à elle seule, la règle de priorité aurait donc pu redonner la préséance à ce nom, celui-là même qui avait entretenu deux siècles de confusion. Le Code prévoit justement une soupape : le rejet d’un nom devenu source d’erreur persistante. La catégorie de nomen ambiguum ayant été abandonnée en 1975, L. spica a été formellement rejeté au début des années 2000, après une proposition publiée en 2001 et une décision du comité compétent en 2004. Il figure depuis dans la liste des noms rejetés (Appendice V du Code). La priorité fixe la règle générale ; le rejet corrige ses effets pervers.

    Le cas vera : quand les référentiels divergent

    Le nom Lavandula vera montre que la synonymie est bien un jugement. Pour les bases de Kew (POWO) et le World Flora Online, il n’est pas synonyme de la lavande de Provence, mais de la sous-espèce des Pyrénées, Lavandula angustifolia subsp. pyrenaica, que De Candolle a d’ailleurs décrite à la même page sous le nom de L. pyrenaica. Le référentiel français BDTFX, diffusé par Tela Botanica, le rattache simplement à l’espèce L. angustifolia au sens large. L’ouvrage de référence de Bean le qualifie de nom superflu pour L. angustifolia, en notant qu’il a été appliqué en horticulture à des lavandes hollandaises plus proches des hybrides.

    Au rang de l’espèce, tous s’accordent : vera relève bien de L. angustifolia. Au rang de la sous-espèce, ils divergent. Le nom qui promettait l’authenticité est donc aussi celui dont le rattachement est le moins net. On le rencontre pourtant encore dans des ouvrages et sur des étiquettes, sans que cela traduise nécessairement autre chose qu’une habitude d’usage.

    En français, aucun arbitre

    Les noms vernaculaires, eux, n’obéissent à aucun code. Ils se superposent au gré des usages, et chacun encode un critère différent :

    • officinale renvoie à un usage, celui des apothicaires ;
    • vraie renvoie à une authenticité, par contraste avec l’aspic et, plus tard, avec le lavandin hybride ;
    • fine renvoie à une qualité olfactive, une essence plus délicate que celle, camphrée, de l’aspic ou du lavandin.

    La tradition opposait même lavande « femelle », la lavande fine, et lavande « mâle », l’aspic, encore appelée « grande lavande ». Les textes officiels emploient d’ailleurs « vraie » et « fine » comme équivalents : la présentation de l’appellation d’origine par l’INAO parle de l’espèce dite « lavande vraie » ou « fine ».

    La distinction qui compte : population ou clone

    Si « vraie » et « fine » ne distinguent rien, une autre opposition, elle, a une portée pratique : celle qui sépare la lavande de population de la lavande clonale.

    Une lavande de population est issue de semis. Chaque graine résulte d’une recombinaison génétique : chaque pied possède son propre génotype, et l’huile distillée d’un champ correspond à la somme d’une population diversifiée. Une lavande clonale, comme les variétés Maillette ou Matherone, est multipliée par bouturage : tous les pieds partagent le même génotype, ce qui produit une huile plus homogène et plus reproductible d’un lot à l’autre.

    Cette distinction est inscrite dans les textes. L’appellation d’origine protégée « Huile essentielle de lavande de Haute-Provence », reconnue en 1981, exige des plantations constituées d’une population de plants d’origine locale reproduits exclusivement par semis, et exclut explicitement les plantations issues de clones. Selon une étude de FranceAgriMer, l’appellation a précisément été créée pour différencier l’huile de lavande fine de population des huiles de lavandes clonales. La norme internationale ISO 3515 caractérise elle aussi séparément les huiles de lavande de population et les huiles de lavande clonale.

    Ce qu’il faut en retenir, et ce qu’il ne faut pas en conclure : population et clone donnent des profils chimiques différents, plus complexes et plus variables d’un côté, plus constants de l’autre. Aucune donnée solide ne permet en revanche d’affirmer qu’une huile de population soit thérapeutiquement supérieure à une huile clonale de bonne qualité. La différence porte sur la composition, sa variabilité et la traçabilité, pas sur une efficacité démontrée.

    Le vrai risque de confusion : aspic et lavandin

    La confusion la plus lourde de conséquences ne se situe pas entre vera et angustifolia, qui désignent la même espèce, mais avec deux plantes réellement différentes.

    • La lavande aspic, Lavandula latifolia Medik., donne une huile nettement plus camphrée que la lavande fine.
    • Le lavandin, Lavandula × intermedia, est un hybride entre lavande fine et lavande aspic. Multiplié par voie végétative, cultivé à grande échelle depuis les années 1920, il donne une huile moins coûteuse, largement utilisée en savonnerie et en parfumerie technique.

    La teneur en camphre est un marqueur discriminant : de l’ordre de 1 % au plus pour la lavande fine, plusieurs pour cent pour le lavandin. Les normes ISO 3515 (lavande) et ISO 8902 (lavandin) fixent les plages de référence. Le coupage d’une huile de lavande par du lavandin, ou la vente de lavandin sous le nom de lavande, constitue une adultération classique, que seule une analyse chromatographique permet de détecter de façon fiable. Voir à ce propos notre vidéo sur la qualité, l’adultération et le sourcing en phyto-aromathérapie.

    Ce qu’il faut lire sur un flacon

    De toute cette histoire découle une grille de lecture simple pour choisir une huile essentielle de lavande fine :

    • Le nom latin complet, avec son auteur : Lavandula angustifolia Mill. C’est le nom retenu par la Pharmacopée européenne et par la norme ISO 3515. Un « Lavandula vera » sur une étiquette n’est pas une fraude, mais signale une imprécision qui justifie de demander davantage d’informations.
    • L’absence d’ambiguïté avec l’aspic et le lavandin : Lavandula latifolia et Lavandula × intermedia sont d’autres plantes, aux huiles différentes.
    • La partie distillée : les sommités fleuries.
    • Le type de culture et l’origine : population ou clone. La mention AOP Haute-Provence garantit une lavande de population.
    • Le bulletin d’analyse chromatographique : il permet de vérifier la conformité du profil (linalol, acétate de linalyle, camphre notamment) aux normes de référence.
    En résumé Trois noms latins pour une même espèce : Lavandula angustifolia Mill. est le seul correct, par application de la règle de priorité. « Vraie » et « fine » sont synonymes en français ; la distinction utile oppose lavande de population et lavande clonale. Les vraies confusions à risque concernent l’aspic et le lavandin, que seule l’analyse chromatographique permet d’écarter avec certitude.

    Conclusion

    Un nom de plante n’est pas une étiquette posée sur une évidence. C’est une référence dont la résolution dépend d’un code, d’un spécimen type et d’un jugement taxonomique, et dont l’histoire laisse des traces jusque sur les flacons. Pour le praticien comme pour l’utilisateur, la précision du nom latin est le premier maillon de la chaîne de qualité. Elle ne suffit pas, mais sans elle, aucun des contrôles suivants n’a de sens.

    Sources

    Transparence IA : Le texte a été reformulé par l’IA à partir de mes notes et mon brouillon d’article.

    Ce article risque de vous faire penser à une publication sur les réseaux sociaux de l’École des Plantes de Paris, c’est tout à fait normal, j’alimente le compte de l’école des plantes 🙂

  • Safran et TDAH

    Ce que dit vraiment la science

    Un essai clinique en double aveugle a comparé le safran au méthylphénidate (la molécule de la Ritaline) chez des enfants diagnostiqués TDAH. Sur six semaines, aucune différence significative n’est apparue sur les échelles de symptômes. De quoi nourrir les titres les plus enthousiastes. La réalité est plus étroite, et plus intéressante : une piste réelle mais fragile, un effet plausible sur un versant précis du trouble seulement, une tradition qui avait visé juste sur le bienfait comme sur le danger et un problème de qualité qui défait la plupart des usages naïfs. Cet article fait le tour de la question en séparant, à chaque étape, ce qui est démontré, ce qui est seulement plausible, et ce qui reste une hypothèse.

    Ce que montrent les essais et leurs limites

    L’étude fondatrice date de 2019 : cinquante-quatre enfants et adolescents, diagnostiqués selon les critères officiels, répartis à l’aveugle entre safran et méthylphénidate pendant six semaines. Aucune différence significative sur les échelles de symptômes remplies par les parents et les enseignants, et des effets indésirables comparables entre les deux groupes. Une revue systématique de 2024 a agrégé l’ensemble du corpus : quatre essais cliniques, cent dix-huit patients au total. La conclusion globale est que le safran fait aussi bien que le méthylphénidate en monothérapie et apporte un bénéfice additionnel en adjuvant, avec un signal qui revient sur l’hyperactivité et le sommeil.

    Ces résultats sont réels. Ils sont aussi minces, et il faut le dire avec la même netteté. Cent dix-huit patients, ce n’est pas cent dix-huit par étude : c’est le total du domaine, toutes recherches confondues. Six semaines ne disent rien du long terme. L’essentiel de ces travaux provient d’un même réseau de recherche, dans une même région du monde, sans réplication indépendante à grande échelle. Et les mesures portent sur des scores de symptômes, non sur des critères fonctionnels, réussite scolaire, tenue d’un emploi, vie quotidienne.

    D’où une première distinction, décisive : « comparable au méthylphénidate dans un essai de six semaines sur cent dix-huit patients » et « le safran fonctionne » ne sont pas la même affirmation. La première est un résultat ; la seconde, une conclusion générale qui n’est pas encore autorisée. [démontré] une efficacité comparable à court terme sur des échelles de symptômes, dans de petits effectifs. [non établi] l’efficacité à long terme, sur le fonctionnement réel, et comme énoncé général.

    Le TDAH n’est pas une seule chose et le safran ne parle qu’à une partie

    C’est le point que la plupart des présentations escamotent, et c’est lui qui distingue une connaissance réelle du trouble d’une simple application de recette. Le TDAH n’est pas un bloc homogène. Il recouvre au moins trois dimensions en partie indépendantes : l’inattention (difficulté à soutenir la concentration), l’hyperactivité et l’impulsivité (agitation, action précédant la réflexion), et un versant plus discret, motivationnel, l’aversion du délai, la difficulté à attendre une récompense lointaine. Les profils individuels ne se situent pas au même endroit de cet espace.

    Or le signal des essais sur le safran ne porte pas sur « le TDAH » en général : il se concentre sur l’hyperactivité et le sommeil, pas sur l’attention pure. La formulation juste n’est donc pas « safran contre le TDAH » mais « safran plutôt du côté de l’agitation et du sommeil ».

    S’y ajoute un piège d’interprétation qu’il faut nommer. Le safran améliore l’humeur et le sommeil, ces effets-là sont d’ailleurs mieux établis que son action sur le TDAH lui-même. Chez une personne dont le TDAH est aggravé par un mauvais sommeil et une humeur basse, restaurer le sommeil et l’humeur produira un mieux-être bien réel, qui pourra ressembler à une amélioration du TDAH. Mais le déficit attentionnel de fond, lui, peut n’avoir pas bougé. Ce qui s’améliore alors, c’est le terrain autour du trouble, non le trouble lui-même. Se sentir mieux et voir son TDAH traité sont deux choses distinctes ; les confondre ouvre la porte à toutes les surestimations.

    Pourquoi une épice pourrait agir ?

    Cette section s’adresse surtout à qui veut comprendre le « comment » ; elle éclaire la crédibilité biologique de l’effet, sans rien prouver de plus que ce que disent les essais.

    Les principes actifs du safran sont la crocine et la crocétine (responsables de la couleur), la picrocrocine (l’amertume) et le safranal (l’arôme). Sur le système nerveux, plusieurs mécanismes convergent : une inhibition de la recapture des monoamines, la crocine agissant plutôt sur la dopamine et la noradrénaline, le safranal sur la sérotonine, un antagonisme des récepteurs NMDA, un effet GABA-A, une modulation de la voie BDNF/CREB, et des propriétés antioxydantes et anti-inflammatoires. Chez l’animal, l’extrait augmente les concentrations cérébrales de dopamine.

    Le point à retenir, correctement calibré : la dopamine et la noradrénaline sont précisément les neurotransmetteurs impliqués dans le TDAH et sur lesquels agissent les stimulants. Le safran pousse le même levier mais beaucoup plus faiblement. C’est ce qui rend un effet biologiquement crédible [plausible]. Cela ne démontre pas que c’est par cette voie que le safran agirait dans le TDAH, ni que l’effet clinique est établi : le mécanisme explique une plausibilité, il ne remplace pas la preuve.

    Ce que la tradition avait pressenti

    L’usage n’a rien de nouveau. Au XIe siècle, Avicenne décrit le safran dans son Canon de la médecine parmi les remèdes qui élèvent l’humeur et favorisent le sommeil ; la médecine traditionnelle persane et islamique lui réserve un qualificatif dédié, « exhilarant », littéralement ce qui réjouit. Mille ans avant qu’on puisse mesurer un neurotransmetteur, la tradition avait donc désigné exactement les deux axes que la recherche moderne retrouve : humeur et sommeil.

    Cette convergence est frappante, mais son statut doit rester clair : « utilisé depuis mille ans » n’est pas une preuve d’efficacité. La tradition oriente, elle a fait viser la bonne cible, sans se substituer à l’essai clinique. C’est une boussole, non une démonstration.

    Il y a néanmoins une raison concrète de la prendre au sérieux comme boussole : sur le safran, elle n’a pas seulement vu juste sur l’effet, mais aussi sur le risque. Le même Canon range le safran parmi les substances emménagogues, susceptibles de déclencher l’accouchement. La toxicologie moderne le confirme : à forte dose, le safran est abortif, et il est formellement contre-indiqué pendant la grossesse. La même tradition qui avait raison sur le bienfait avait raison sur le danger, rappel utile qu’une plante qui agit assez pour aider agit assez pour nuire, et que le « naturel donc sans danger » n’existe pas.

    Sécurité, dose et le problème de la qualité

    À la dose clinique, environ 30 mg par jour d’extrait standardisé, le safran est très bien toléré, avec des effets indésirables légers et peu fréquents (nausées, céphalées, variations d’appétit). Les précautions à connaître : contre-indication absolue en grossesse et allaitement ; prudence en cas de prise d’un antidépresseur sérotoninergique, le safran touchant la même chimie de la sérotonine et les effets pouvant s’additionner ; arrêt une semaine à dix jours avant une chirurgie programmée (effet sur la coagulation) ; et données de sécurité à long terme insuffisantes chez l’enfant et l’adolescent.

    Reste l’obstacle le plus concret, et le plus souvent passé sous silence : la qualité. Le safran est l’une des denrées les plus chères au monde et, à ce titre, l’un des produits les plus adultérés, coupé, teinté, alourdi, remplacé, le tout invisible à l’œil nu en poudre. Même un safran authentique peut être inactif : ses molécules actives se dégradent à la lumière, à la chaleur et à l’air. Surtout, les essais qui montrent un signal n’ont pas utilisé des pistils du commerce mais des extraits standardisés, dont la teneur en crocine et en safranal est mesurée et garantie par un certificat d’analyse (les extraits affron, Safr’Inside ou Satiereal reviennent dans la littérature). « Le safran a montré un effet » et « ce sachet de safran a un effet » ne sont donc pas équivalents : ce qui a été testé est une molécule dosée. Les marqueurs à vérifier sont une teneur en safranal affichée, une origine tracée et un certificat d’analyse ; à défaut, le produit doit être considéré comme inconnu.

    Où situer le safran

    La réponse honnête tient en peu de mots. Le safran n’est pas un substitut des stimulants : leur effet sur le TDAH demeure, à ce jour, le mieux établi de tous. Le présenter comme « la Ritaline naturelle » est faux. Ce qu’il peut prétendre être, au mieux, est un appoint : un candidat adjuvant, sur un axe précis (humeur, sommeil, éventuellement agitation), à environ 30 mg/jour d’extrait standardisé, jamais pendant la grossesse, avec prudence en cas d’antidépresseur sérotoninergique, et toujours dans le cadre d’un suivi médical, non d’une décision solitaire.

    Au fond, l’intérêt de ce dossier dépasse le safran. Deux erreurs faciles l’encadrent : l’emballement (« une alternative naturelle aux médicaments ! ») et le mépris (« une simple épice, effet placebo »). Les deux sont faux. La réalité occupe un couloir étroit qu’il faut apprendre à tenir : une piste réelle mais fragile, un effet plausible sur un versant précis, une tradition qui oriente, un profil de sécurité à respecter, un piège de qualité. Savoir distinguer ce qui est démontré, ce qui est plausible et ce qui reste hypothétique n’est pas seulement utile pour le safran : c’est la grille qui protège de l’emballement comme du mépris, et qui servira pour la prochaine plante et la prochaine promesse.

    En résumé, par niveau de preuve

    • Démontré : à court terme (≈ 6 semaines), sur de petits effectifs, le safran (extrait standardisé) fait aussi bien que le méthylphénidate sur les échelles de symptômes, avec un profil d’effets indésirables favorable. Contre-indication de grossesse (effet abortif à forte dose).
    • Plausible : un effet propre sur l’axe humeur / sommeil / hyperactivité ; une plausibilité mécanistique via la modulation des monoamines.
    • Hypothèse / non établi : une efficacité sur l’inattention pure ; un bénéfice à long terme ou fonctionnel ; une place autre qu’adjuvante ; que le mécanisme monoaminergique soit bien la voie de l’effet clinique.

    Sources

    • Baziar S. et al. (2019). Crocus sativus L. versus methylphenidate in treatment of children with ADHD: a randomized, double-blind pilot study. Journal of Child and Adolescent Psychopharmacology.
    • Seyedi-Sahebari S. et al. (2024). The Effects of Crocus sativus (Saffron) on ADHD: A Systematic Review. Journal of Attention Disorders (4 essais, 118 patients).
    • Essai adulte en adjuvant : safran en complément du méthylphénidate chez l’adulte TDAH (randomisé, double aveugle, contrôlé placebo).
    • Hausenblas H. A. et al. (2013) et méta-analyses ultérieures : safran dans la dépression et l’anxiété (~28–30 mg/j).
    • Hosseinzadeh H. et al. : Avicenna’s Canon of Medicine and saffron — a review (usages traditionnels : antidépresseur, hypnotique, emménagogue).
    • Revues sur les mécanismes d’action (crocine, crocétine, safranal), sur l’adultération du safran et sur les extraits standardisés (affron, Safr’Inside, Satiereal) ; données toxicologiques (effet abortif à forte dose).
  • Menthe poivrée et thermorégulation

    Pourquoi le menthol ne rafraîchit pas, et pourquoi ce n’est pas la bonne question

    On vend la menthe poivrée comme « rafraîchissante ». En canicule, on se vaporise de l’hydrolat ; on se frictionne les tempes ; on met une goutte d’huile essentielle dans l’eau d’un brumisateur. La sensation est franche, immédiate, réelle. Et pourtant le menthol ne retire pas la moindre calorie au corps. Cet article part de ce paradoxe apparent pour défendre une idée simple et, je crois, plus féconde que l’éternel débat « ça marche / ça ne marche pas » : le menthol n’est ni rafraîchissant ni trompeur en soi. Il émet un signal unique, « froid », dont le sens est décidé ailleurs, par le système qui le lit et par l’état dans lequel ce système se trouve. Suivons ce signal chez ses différents lecteurs : à chaque fois, sa valeur change de signe.

    Une convention de lecture. J’indique entre crochets le statut de chaque affirmation, parce que tout ne se vaut pas : [démontré] pour ce qui est solidement établi, [bien étayé] pour ce qui repose sur des données convergentes mais contextuelles, [plausible] pour une inférence mécaniste cohérente non directement prouvée, [contesté] pour ce sur quoi la littérature n’est pas unanime. La rigueur n’est pas l’ennemie de l’usage : elle le vise mieux.

    1. Le wagon frigorifique, ou pourquoi croire n’a jamais déplacé un joule

    Commençons par une histoire que vous avez peut-être croisée. Un cheminot se retrouve enfermé par mégarde dans un wagon frigorifique. Il sait, croit-il, qu’il va mourir de froid. Au matin, on le retrouve mort, entouré de notes décrivant son agonie glacée. Or le groupe froid était à l’arrêt et la température, parfaitement survivable. Il se serait « tué par la seule force de la pensée ».

    Le récit circule sous le nom de « Nick Sitzman », colporté par la littérature de développement personnel. C’est une légende urbaine [contesté, en réalité non documenté] : on n’en trouve aucune trace dans un dossier réel, les variantes sont interchangeables (parfois c’est une chambre hermétique où l’homme s’asphyxie alors qu’une aération l’alimente en air), et la « note du mourant » est un ressort narratif obligé, pas une pièce d’enquête. Surtout, la prémisse thermique est fausse : à 13–16 °C, habillé, en air immobile, sur une nuit, un adulte sain ne meurt pas d’hypothermie. Sa production métabolique de base dépasse largement ses pertes.

    Cette légende est un excellent point de départ, à condition de la retourner. Il n’existe aucune voie physiologique qui aille de la croyance qu’il fait froid vers une perte de chaleur. La température centrale ne baisse que de deux façons : par un échange thermique réel avec un gradient réel, ou par un contrôleur défaillant qui n’assure plus la défense. Croire n’est ni l’un ni l’autre. Pire pour la légende : la réponse normale du corps à un signal de froid est de se défendre contre le froid, vasoconstriction, frissons, thermogenèse, donc de se réchauffer, pas de se refroidir. La physiologie y est à l’envers.

    De là notre fil, et notre axiome : la perception thermique n’est pas un flux thermique. Un signal de froid n’est pas du froid. Ce que le corps ressent et ce que la thermodynamique fait sont deux grandeurs distinctes, et tout le malentendu populaire sur la menthe naît de leur confusion. Gardez le wagon en tête : nous y reviendrons, parce que le menthol tend exactement le même piège cognitif.

    2. Un seul signal : TRPM8 et le faux froid

    La peau possède un capteur de froid : le canal TRPM8, exprimé sur une sous-population de neurones sensoriels. Il s’ouvre quand la température descend sous ~28 °C mais aussi quand une molécule vient l’activer chimiquement. Le menthol est précisément cet agoniste. Identifié au début des années 2000 (McKemy et coll. ; Peier et coll.), TRPM8 est le récepteur commun du froid et du menthol [démontré]. Conséquence directe : le menthol produit la sensation de froid en découplant cette sensation de la température réelle de la peau. Un voyant « froid » s’allume alors qu’il ne fait pas froid.

    Sur le plan thermodynamique, le verdict est sans appel : le menthol ne retire aucune chaleur [démontré]. Pas de changement d’état, pas de gradient créé, pas de puits thermique. Le peu de froid réel qu’on ressent avec un hydrolat vient d’ailleurs : de l’eau qui s’évapore de la peau, exactement comme la sueur (≈ 2,4 kJ par gramme d’eau évaporée). De l’eau pure en spray ferait le même travail. La menthe, elle, n’ajoute que la perception.

    Tenons donc le menthol pour ce qu’il est du point de vue du système nerveux : une entrée unique, un signal afférent « froid ». Ce qui suit est l’histoire de ce même signal injecté dans plusieurs boucles de régulation qui ne l’interprètent pas de la même manière.

    3. Premier lecteur : le contrôleur thermique

    Le premier système à lire le signal est le contrôleur thermorégulateur de l’hypothalamus. Il reçoit les afférences thermiques, les intègre, et commande les effecteurs : vasomotricité cutanée, sudation, frissons, thermogenèse. Face au même faux froid, ce contrôleur va se comporter de trois façons très différentes selon la situation. C’est ici que la valence du menthol s’inverse pour la première fois.

    3.1 En canicule, sur la peau : le leurre nuisible

    Décomposons le geste « je me mets de la menthe pour avoir moins chaud » en trois canaux indépendants, la confusion populaire vient de ce qu’on les vit comme une seule sensation.

    Canal perceptuel (le leurre TRPM8) : le menthol allume la sensation de froid. Pur gain de ressenti, aucune action sur le flux de chaleur.

    Canal évaporatif (le solvant) : l’eau du produit s’évapore et retire, elle, de vraies calories. Mais c’est l’eau qui travaille, transitoirement, proportionnellement à la masse déposée et l’effet s’effondre quand l’air est humide.

    Canal sudomoteur (l’inhibition de la sueur) : c’est le canal qui se retourne contre nous. Le signal « froid » remonte le seuil de déclenchement de la sudation : on transpire plus tard et moins [bien étayé sous contrainte thermique/effort]. Dans une étude sur nageurs, le menthol a relevé d’environ 0,32 °C le seuil de température centrale déclenchant la transpiration.

    Pourquoi cela devient grave précisément en canicule ? Parce que la hiérarchie des voies de dissipation bascule avec la température ambiante. Tant qu’il fait plus frais que la peau, le corps évacue par rayonnement et convection. Au-delà de ~35 °C, l’air devient une entrée de chaleur : rayonnement et convection s’inversent, et il ne reste qu’une seule voie de sortie nette, l’évaporation de la sueur [démontré, physique du bilan thermique]. Brider la sudation à ce moment, c’est éteindre le dernier climatiseur disponible. Le canal perceptuel, lui, aggrave le tableau : en se sentant « fraîche », la personne boit moins, s’évente moins, cherche moins le vrai frais. Le menthol coupe l’alarme sans éteindre l’incendie.

    Nuance indispensable, la même que pour le ventilateur : tout dépend de si la sueur peut s’évaporer. En air sec et ventilé, l’évaporation est efficace, et la brider coûte cher. En air saturé où la sueur ruisselle sans s’évaporer, ce canal joue moins. La menthe reste néanmoins, dans tous les cas de chaleur réelle, au mieux inutile pour refroidir, au pire contre-productive.

    Point praticien·ne : Hydrolat vs huile essentielle en canicule
    Hydrolat : surtout de l’eau. Le canal évaporatif domine (petit refroidissement réel, mais c’est l’eau) ; canal perceptuel modéré ; canal sudomoteur négligeable à cette dilution. Bilan : neutre à légèrement positif, équivalent d’un spray d’eau, la menthe ajoutant du confort, pas du froid. Huile essentielle : quasi pas de solvant déposé. Canal évaporatif ≈ 0 (aucun froid réel), canal perceptuel maximal (illusion la plus forte), canal sudomoteur maximal (charge de menthol la plus élevée), plus un risque d’irritation/sensibilisation sur grande surface. Bilan : défavorable. Message opérationnel : en canicule, fie-toi à ce qui retire des calories (eau + air), pas à ce qui te le fait croire.

    3.2 Dans la bouffée de chaleur : le leurre bénin

    Changeons de physiologie, car c’est ici que le raisonnement devient piégeux : une bouffée de chaleur n’est pas une surchauffe. C’est une fausse alarme.

    Le mécanisme est aujourd’hui bien caractérisé [démontré]. Le retrait œstrogénique de la ménopause lève l’inhibition qui pesait sur les neurones dits KNDy (kisspeptine, neurokinine B, dynorphine) de l’hypothalamus. Leur hyperactivité fait déborder la neurokinine B sur le centre thermorégulateur voisin et rétrécit la zone thermoneutre. L’intervalle de température centrale que le cerveau tolère sans réagir. Résultat : une petite élévation thermique, normalement anodine, franchit désormais le seuil et déclenche une réponse de dissipation disproportionnée : vasodilatation cutanée (le flush), sudation, sensation intense de chaleur. Le noyau, lui, est à peu près normal. Le corps actionne sa vraie machinerie de refroidissement contre une menace largement imaginaire.

    Rejouons alors nos trois canaux dans ce contexte. Le canal perceptuel attaque exactement le symptôme dominant, la sensation de chaleur, et surtout, il ne masque aucune menace réelle : il n’y a pas de surchauffe à cacher. Le canal évaporatif (l’eau d’un hydrolat sur une peau déjà vasodilatée et moite) apporte un vrai petit refroidissement et aide la bouffée à se résoudre. Le canal sudomoteur, ici, vise une sudation qui est elle-même le symptôme indésirable, et dont aucune survie ne dépend. Les trois pointent dans le même sens : le leurre est bénin, voire utile.

    C’est le même opérateur qu’en canicule, de valence opposée. Le principe général se dessine : masquer une perception n’est délétère que si cette perception signale quelque chose de réel. La température ambiante n’est qu’un indicateur de laquelle des deux situations on se trouve.

    Point praticien·ne ; bouffée de chaleur
    Le menthol n’agit qu’en périphérie (TRPM8 cutané). Il ne touche pas la cause centrale le rétrécissement de la zone thermoneutre par les KNDy. C’est du confort symptomatique, pas un traitement : les leviers mécanistiques sont l’hormonothérapie et les antagonistes des récepteurs NK3 (type fézolinétant). À dire clairement si on présente la menthe comme « solution ».
    Hypothèse à tester [plausible, non démontré] : une bouffée se termine souvent par un frisson (overshoot de dissipation). Ajouter un signal froid TRPM8 à ce moment pourrait théoriquement accentuer ou prolonger ce frisson post-bouffée. Contexte à ne pas oublier : une bouffée pendant une canicule superpose une vraie charge externe à la fausse alarme. On repasse alors dans le régime de la section 3.1.

    3.3 Dans le verre : le leurre bénéfique

    Le cas de la boisson est le plus riche, parce que la voie orale renverse plusieurs choses. L’intuition à tester : peut-on obtenir la sensation d’une boisson fraîche avec une boisson à une température réelle plus supportable pour le corps ? La réponse est oui, et elle repose sur un détail anatomique élégant.

    L’inconvénient thermorégulateur d’une boisson glacée n’est pas le froid lui-même : c’est qu’il coupe la sudation. L’ingestion de liquide froid stimule des thermorécepteurs abdominaux qui réduisent la sudation, indépendamment de la température centrale et cutanée [bien étayé — travaux d’Ollie Jay et coll.]. Et voici le pivot : ces variations de sudation sont commandées par les thermorécepteurs abdominaux, pas par les thermorécepteurs oraux. Autrement dit, la sensation de froid dans la bouche ne déclenche pas l’inhibition de la sueur ; c’est le froid réel arrivant dans l’estomac qui la déclenche.

    Le menthol agit précisément sur le premier canal TRPM8 oral sans envoyer de froid à l’abdomen. Une eau tempérée mentholée délivre donc la perception de fraîcheur sans le signal abdominal qui brimerait la transpiration. On récolte le confort d’une boisson « fraîche » tout en gardant la sudation en ligne.

    La conséquence est contre-intuitive et documentée. En ambiance sèche et ventilée, la baisse de sudation provoquée par une boisson glacée diminue la perte évaporative d’un montant qui annule au moins le refroidissement gagné en réchauffant le liquide froid [bien étayé]. La boisson glacée ne refroidit alors pas davantage qu’une boisson tempérée : elle a troqué un vrai puits de chaleur contre une sudation bridée. Ta boisson tempérée mentholée, elle, garde la sueur active tout en donnant le confort, au moins équivalente, plausiblement supérieure en chaleur sèche.

    La nuance humidité inverse le classement, comme toujours. En air saturé où la sueur ruisselle sans s’évaporer, le puits de chaleur d’une boisson froide n’est plus compensé, et un vrai refroidissement net apparaît : là, le froid réel reprend l’avantage, et le menthol n’apporte que la perception. Enfin, au repos avant même que la sudation ne démarre, une boisson froide abaisse la température centrale comme attendu, faute de sueur à réduire.

    Un point domine tout le reste, et il est souvent négligé : en canicule, la propriété la plus importante d’une boisson est qu’on la boive assez. L’hydratation soutient la volémie et donc la sudation. Si le menthol rend une eau tempérée désirable et « fraîche », il peut augmenter le volume ingéré, bénéfice réel via l’hydratation.

    Point praticien·ne : la boisson mentholée
    Tension honnête à tenir [contesté] : le menthol stimule les récepteurs oraux du froid et pourrait, comme l’eau froide atténuer la soif, donnant le signal de désaltération sans réhydrater. Les données sont équivoques (la soif perçue n’était pas réellement plus basse dans certaines études). Double tranchant non résolu : palatabilité qui fait boire plus / fausse désaltération qui fait boire moins. À la dilution d’un hydrolat, l’effet net est inconnu. En pratique : une eau fraîche (non glacée) parfumée à l’hydrolat de menthe est un bon compromis en chaleur sèche, elle préserve la sudation et favorise le boire. En ambiance très humide, la fraîcheur réelle (boisson froide) reprend l’avantage thermique.

    4. Quand le contrôleur est sabordé : l’hypothermie d’intoxication

    On entend parfois qu’un abus d’huile essentielle de menthe poivrée peut conduire à une hypothermie. C’est possible mais pas par le mécanisme qu’on invoque, et le mécanisme populaire est même à l’envers.

    L’idée naïve serait : le cerveau croit qu’il fait froid, donc il refroidit. Or croire au froid déclenche une défense contre le froid, c’est-à-dire une production de chaleur. C’est bien ce que fait le menthol comme agoniste TRPM8 : chez l’animal, il abaisse les seuils de déclenchement des réponses de défense au froid (frissons, thermogenèse, vasoconstriction) et, par voie systémique, augmente la thermogenèse du tissu adipeux brun [démontré chez l’animal]. La contre-épreuve est parlante : c’est le blocage de TRPM8, non son activation, qui fait chuter la température centrale (d’environ 0,8 °C avec un antagoniste). L’agonisme TRPM8 est donc biaisé vers le réchauffement, pas vers le refroidissement.

    D’où vient alors l’hypothermie réelle d’un surdosage ? D’une tout autre porte, qui n’a rien à voir avec le capteur de froid. À dose toxique, l’huile essentielle agit comme un dépresseur du système nerveux central : chez le rat, des huiles de Mentha produisent une dépression du SNC et une hypothermie, avec convulsions et dépression respiratoire [démontré chez l’animal]. Chez l’humain, les intoxications documentées dessinent le même tableau central, coma, dépression respiratoire, hypotension rattaché à une action centrale directe [cohérent ; l’hypothermie y est plausible, moins systématiquement chiffrée que chez l’animal]. Le menthol y agit hors TRPM8 (inhibition des canaux sodiques, stimulation kappa, vasodilatation cutanée).

    Le mécanisme de l’hypothermie devient alors banal, celui de tout dépresseur central (alcool, barbituriques, opioïdes) : le contrôleur hypothalamique est sidéré, thermogenèse et tonus vasculaire lâchent, l’organisme dérive vers la température ambiante. S’il fait frais, cela finit en hypothermie. Ce n’est pas un « signal froid » qu’on suit c’est un thermostat en panne. Deux garde-fous : d’abord l’échelle de dose (on parle d’intoxication franche par ingestion, de l’ordre du gramme par kilo pour le pronostic vital, sans rapport avec un brumisateur d’hydrolat) ; ensuite la confusion sensation/mesure — un menthol systémique peut donner une sensation de froid global qui, dans un récit, devient facilement « il était en hypothermie ». On retrouve le wagon : le ressenti n’est pas la mesure.

    5. Deuxième lecteur : la douleur

    Reste un lecteur qui change la nature du sujet, parce qu’il n’a rien à voir avec la température : le système nociceptif. C’est l’usage des baumes et gels mentholés contre les douleurs articulaires, musculaires, ou les céphalées.

    Le mécanisme est net [démontré] : l’essentiel du pouvoir analgésique du menthol provient de l’activation de TRPM8 (Liu et coll.). Trois strates se superposent.
    Contre-irritation segmentaire : le menthol impose un afflux d’afférences froides non douloureuses qui referme partiellement la « porte » médullaire sur le message douloureux. C’est la logique du gate control ; il stimule d’abord les nocicepteurs puis les désensibilise, et il est vasoactif (Pergolizzi et coll.).
    Voie centrale : des travaux impliquent les récepteurs métabotropiques du glutamate de groupe II/III et une signalisation kappa-opioïde endogène, ce n’est donc pas qu’une distraction périphérique (nuance : dans certains modèles neuropathiques, l’analgésie n’est pas levée par la naloxone, ce qui situe l’implication opioïde comme dépendante du modèle) [bien étayé, mécanisme central en cours de caractérisation].
    Blocage membranaire : le menthol inhibe aussi des canaux sodiques voltage-dépendants des neurones sensoriels, une composante quasi anesthésique locale, indépendante du signal « froid » lui-même.

    Et voici l’inversion qui rime avec tout le reste de l’article. À forte concentration, ça bascule : au-delà d’environ 10 % (640 mM chez le rongeur), le menthol induit allodynie et hyperalgésie au froid par sensibilisation de TRPM8, l’irritation venant de l’activation d’un autre canal, TRPA1 [démontré]. Plus frappant encore, la dissociation clinique : le menthol provoque une allodynie au froid chez le volontaire sain, mais un effet analgésique chez le patient neuropathique. Même molécule, même récepteur, effet opposé selon l’état du circuit, le pendant exact de « même leurre, valence opposée selon le contexte thermique ».

    Le point conceptuel central : dans l’usage antalgique, le fait que le menthol ne refroidisse pas réellement est totalement hors sujet. On ne cherche pas à retirer des calories d’un genou ; on cherche à moduler la transmission nociceptive. La « fausseté » du froid, péché originel en canicule, devient ici une non-question. Le froid n’est plus ni piège ni confort : c’est un outil neurologique. Le mot « leurre » lui-même ne convient plus, parce que le trafic TRPM8 fait un vrai travail sur les circuits de la douleur.

    Point praticien·ne : la synergie antalgique
    Ne pas fondre les niveaux. Dans un baume menthol + gaulthérie (salicylate de méthyle), les deux ne travaillent pas au même étage : le menthol agit sur la transduction, la transmission et la perception de la douleur (neural) ; le salicylate sur la biochimie inflammatoire (cascade de l’acide arachidonique, inhibition COX). Une bonne synergie n’est pas « plus de froid » : c’est une action parallèle sur des mécanismes distincts. Le nommer évite le récit magique du « ça potentialise ». Le paradoxe vasculaire : le baume est perçu froid mais le menthol est vasoactif et rougit souvent la peau, un « froid » qui augmente localement le débit sanguin. Sensation et réalité physique divergent encore. Bornes de dose et de surface : l’usage antalgique est thermorégulatoirement négligeable parce qu’il est local. Un grand emplâtre mentholé sur tout le dos en pleine canicule réimporterait les problèmes de la section 3.1. Concentration modérée (l’excès bascule en allodynie/irritation) ; jamais près du visage du jeune enfant (réflexe laryngé/respiratoire).

    6. Synthèse : un signal, plusieurs lecteurs

    Rassemblons. Le menthol, agoniste TRPM8, est une entrée unique un signal afférent « froid ». Ce signal est lu par plusieurs systèmes, et son sens fonctionnel est assigné en aval, par le lecteur et par son état.

    Lecteur du signalCe qu’il en faitCe qui fixe la valence
    Contrôleur thermique (hypothalamus)Réponses thermoeffectrices (sudation, vasomotricité)Charge thermique réelle + voie (cutanée / orale / abdominale)
    Perception conscienteConfort, sensation de fraîcheurMasque-t-elle un danger réel ?
    Système nociceptif (corne dorsale + central)Analgésie — ou allodynieÉtat du circuit (sain vs pathologique), dose

    La formule tient en une ligne : valence = f(lecteur, état, contexte, voie). Le menthol ne « rafraîchit » ni ne « soigne » ; il émet un signal dont plusieurs systèmes décident, chacun à sa manière.

    On peut le dire dans un langage plus structural à condition d’en nommer le statut. Voyons le menthol comme une entrée unique injectée en parallèle dans plusieurs boucles de régulation, chacune étant un opérateur au gain propre, dépendant du contexte : même entrée, sorties de signes différents. C’est une analogie structurelle, pas une identité : le vivant n’est ni linéaire ni invariant, et cette lecture éclaire l’architecture (entrée partagée, lecteurs multiples, gains contextuels) sans prétendre modéliser la biologie. Je la mentionne pour ne pas la laisser opérer en douce.

    Retour au wagon frigorifique : le même axiome dissout la légende et unifie l’article. Le cheminot qui « meurt de froid » par la pensée, le vaporisateur de menthe qui « rafraîchit », le baume qui « refroidit » l’articulation, trois fois la même erreur, traiter une perception comme si elle déplaçait des joules. Une fois cette confusion levée, la menthe cesse d’être magique ou trompeuse : elle devient un opérateur qu’on peut poser au bon endroit.

    7. Pour les praticiennes : un cadre de décision

    Plutôt qu’une liste d’indications, une règle de lecture. Avant de recommander la menthe « pour le frais », posez deux questions : y a-t-il une charge thermique réelle ? et par quelle voie agit-on ?

    • Canicule, personne à risque, application cutanée : déconseillé. Le leurre masque un danger réel et bride une sudation devenue vitale. Orienter vers ce qui retire des calories : eau sur la peau, air qui circule, hydratation, ombre et heures fraîches. Un spray d’eau (avec ou sans hydrolat pour le plaisir) fait le vrai travail.

    • Bouffée de chaleur isolée, ambiance tempérée : acceptable, voire utile, en confort. Fausse alarme sans danger réel à masquer. Préciser que c’est symptomatique, pas un traitement de la cause.

    • Boisson en chaleur sèche : favorable. Une eau fraîche (non glacée) parfumée à l’hydrolat préserve la sudation et favorise le boire. En ambiance très humide, préférer une boisson réellement froide pour le puits de chaleur.

    • Douleur locale : usage pertinent et hors du registre thermorégulateur, à condition de rester local, à concentration modérée, sur surface limitée. Éviter les grandes surfaces en forte chaleur (réimportation des effets thermorégulateurs) et le voisinage du visage chez le jeune enfant.

    • Huile essentielle en grande quantité / ingestion : hors sujet « fraîcheur » et potentiellement dangereux (dépression centrale, hypothermie toxique aux doses d’intoxication). Sans rapport avec l’usage aromatique dilué.

    La ligne directrice : la menthe poivrée n’est ni fraîche ni trompeuse par nature. Elle parle à plusieurs systèmes à la fois, et notre travail est de savoir lequel nous sollicitons, dans quel état il se trouve, et si nous voulons vraiment ce qu’il va faire du signal.

    Sources principales (sélection)

    • McKemy D. et coll., Nature, 2002 — identification de TRPM8 comme récepteur du froid et du menthol ; Peier A. et coll., Cell, 2002.

    • Freedman R. et coll. — thermorégulation de la bouffée de chaleur, rétrécissement de la zone thermoneutre ; revues sur le complexe neuronal KNDy (kisspeptine / neurokinine B / dynorphine) et les antagonistes NK3.

    • Jay O., Morris N. et coll. — ingestion de fluides et thermorégulation ; Bain A., Lespérance N., Jay O., Acta Physiologica, 2012 (boisson chaude et perte de chaleur) ; Morris N. et coll., 2014 (sudation modulée par les thermorécepteurs abdominaux, non oraux).

    • Littérature « menthol mouth rinse » (rinçage oral au menthol) : amélioration du confort et de la performance perçue sans baisse de température centrale.

    • Menthol et thermogenèse / défense au froid chez l’animal ; effet hypothermisant d’un antagoniste TRPM8 (M8-B).

    • Toxicologie des huiles de Mentha : dépression du SNC et hypothermie chez le rongeur ; cas humains d’intoxication à l’huile de menthe (action centrale).

    • Liu Y. et coll., Pain, 2013 — TRPM8, médiateur principal de l’analgésie au menthol ; Pergolizzi J. et coll., J. Clin. Pharm. Ther., 2018 — menthol topique, contre-irritation ; revue Frontiers in Molecular Neuroscience, 2022, sur le menthol dans la douleur.

    • Snopes — « Nick Sitzman » / mort par hypothermie dans un wagon non réfrigéré : légende urbaine non documentée.

    Note épistémique : cet article assemble des mécanismes issus de champs différents (pharmacologie des canaux TRP, physiologie thermorégulatrice, toxicologie, neurophysiologie de la douleur). Les statuts entre crochets signalent où l’on marche sur du solide et où l’on tient une inférence. Les extrapolations à l’hydrolat, moins étudié que le menthol isolé, sont à considérer comme plausibles plutôt que démontrées.

    Transparence IA : Le texte a été remit en forme par Claude à partir de mes notes Obsidian et de mon brouillon.

  • Accompagner après l’ablation de la vésicule biliaire

    Trois ans après son opération, Camille croyait le sujet classé. La vésicule retirée, la convalescence passée, le médecin rassurant : « tout est rentré dans l’ordre ». Et c’est vrai la plupart du temps. Sauf certains matins. Une crampe, une envie pressante, et cette scène qu’elle connaît par cœur : si elle file aux toilettes, c’est liquide ; si elle parvient à attendre quelques minutes, l’envie reflue et la selle suivante est parfaitement normale. Entre deux épisodes, des semaines tranquilles. Puis un dîner un peu riche, un café avalé à jeun, une période de stress, et tout recommence. Ce qui l’angoisse, au fond, ce n’est pas la diarrhée c’est de ne jamais savoir quand.

    Cette histoire est d’une banalité frappante. Et elle cesse d’être mystérieuse dès qu’on comprend ce que faisait, exactement, l’organe qu’on a retiré.

    La vésicule n’était pas un sac, mais un chef d’orchestre

    Le foie fabrique la bile en continu, jour et nuit, un demi-litre environ par jour. Cette bile contient les acides biliaires, de véritables détergents qui émulsifient les graisses pour permettre leur digestion. On imagine souvent la vésicule comme un simple réservoir. C’est réducteur : c’était surtout un organe de mise en forme du flux. Entre les repas, elle stockait la bile et la concentrait. Au moment où le gras arrivait dans l’intestin, elle se contractait et délivrait, d’un coup, une bouffée de bile concentrée, synchronisée avec le besoin.

    Retirez-la, et ce n’est pas la bile qui manque, le foie continue d’en produire autant. C’est la synchronisation qui disparaît. La bile s’écoule désormais en goutte-à-goutte permanent, désynchronisée des repas, y compris à jeun, quand il n’y a rien à digérer. Imaginez un robinet qu’on ouvrait pile au moment du repas, remplacé par un filet qui coule en continu. La moyenne sur la journée est à peu près la même. Mais le timing, lui, a changé.

    Un corps qui n’est pas « cassé », mais à réserve réduite

    Voilà pourquoi « tout est revenu à la normale » est une demi-vérité. En moyenne, oui. Le côlon réabsorbe l’eau, le transit se stabilise, et chez une part notable des personnes opérées, les troubles des premières semaines rentrent dans l’ordre en quelques mois. Une minorité garde une gêne durable, mais pour la plupart, l’équilibre revient.

    Sauf que la marge de sécurité, elle, a diminué. La vésicule était un tampon qui absorbait les à-coups. Sans elle, le système fonctionne près de son seuil : tant qu’on reste en dessous, le côlon gère sans problème ; mais une perturbation transitoire comme un repas gras copieux, le café à jeun, l’alcool, une grosse charge d’aliments fermentescibles, un pic de stress suffit à le faire basculer au-dessus. D’où l’épisode. Puis le système revient à son équilibre. C’est exactement ce modèle qui explique ces crises isolées surgissant des années après l’opération, sur un fond par ailleurs normal.

    Le stress, d’ailleurs, n’est pas ici une formule polie pour « c’est dans la tête ». Il accélère directement la motricité du côlon : moins de temps pour réabsorber l’eau, donc des selles plus liquides. C’est un maillon physiologique réel de la chaîne, pas une cause imaginaire.

    Ce déplacement de regard compte plus qu’il n’en a l’air. Passer de « mon corps est cassé et imprévisible » à « système stable, à réserve réduite, qui réagit à des déclencheurs identifiables » change l’expérience. Et tenir un simple journal déclencheurs ↔ épisodes transforme l’« imprévisible » en « conditionnellement prévisible ». Or ce qui angoisse n’est pas tant la diarrhée que l’imprévisibilité : rendre les épisodes lisibles, c’est déjà désamorcer une bonne part de l’anxiété.

    « Si je me retiens, ça passe » : une question de vitesse, pas de panne

    Le phénomène que décrit Camille mérite qu’on s’y arrête, car beaucoup le vivent sans l’expliquer. L’envie pressante correspond à une vague de contraction qui pousse le contenu vers le rectum. Aller à la selle pendant cette vague, c’est évacuer un contenu transporté trop vite, que le côlon n’a pas eu le temps de déshydrater : résultat, c’est liquide. Se retenir laisse la vague passer ; le rectum s’apaise, le côlon poursuit son travail de réabsorption, et la selle suivante est formée.

    Autrement dit : c’est un problème de vitesse et de timing, pas une défaillance de l’organe. La capacité d’absorption est intacte. Et l’envie est souvent différable, savoir attendre quelques minutes est même une technique reconnue en rééducation de l’urgence. Comprendre cela, c’est déjà reprendre une part de contrôle sur ce qui semblait subi.

    Le piège contre-intuitif : vouloir « soutenir la bile »

    C’est ici que l’intuition trahit. Le réflexe spontané, y compris chez des personnes averties, est de se dire : « je n’ai plus de vésicule, je dois donc soutenir ma bile. » Et de se tourner vers les plantes réputées stimuler le foie et la bile : artichaut, boldo, radis noir, et autres « draineurs hépatiques ».

    Pour le profil le plus fréquent, c’est exactement le contre-sens à éviter. Quand le problème vient d’un excès d’acides biliaires qui atteignent le côlon et y déclenchent une sécrétion d’eau, stimuler encore la bile revient à ajouter de l’irritant là où il y en a déjà trop. On aggrave ce qu’on croyait soulager. Et les plantes vendues comme « régulatrices » ne sont pas davantage un raccourci : sur ce terrain, aucune ne dispense d’avoir d’abord identifié le mécanisme.

    Tout dépend en réalité du profil : une digestion difficile des graisses, une douleur de type spasme, une pullulation bactérienne dans l’intestin grêle ne se gèrent pas de la même façon. C’est précisément pourquoi il faut profiler avant d’agir, un travail qui gagne à être mené avec un·e praticien·ne formé·e, plutôt qu’à coups de réflexes intuitifs.

    Ce qui aide vraiment, sans recette miracle

    Quelques principes, valables pour beaucoup, sans se substituer à un avis personnalisé :

    Structurer les repas plutôt que de les subir. De petites portions régulières, avec un gras réparti plutôt qu’un gros repas gras ponctuel, sollicitent moins un afflux de bile qu’on ne peut plus produire à la demande. À l’inverse, le régime ultra-pauvre en graisses est un faux ami : il n’est pas justifié et finit par nuire à la nutrition.

    Les fibres solubles, flocons d’avoine, psyllium, forment un gel qui raffermit les selles et piège une partie des acides biliaires. C’est l’un des leviers les plus simples et les mieux compris.

    Identifier ses propres déclencheurs avec un journal, on l’a vu, vaut souvent mieux qu’une longue liste d’interdits. Et travailler l’anticipation et le stress, respiration lente, pratiques de régulation, agit sur une cause réelle des épisodes, pas seulement sur le moral.

    Quand il faut consulter

    Comprendre ne dispense pas de vigilance. Certains signes sortent du cadre d’un simple inconfort fonctionnel et imposent un avis médical : un amaigrissement, du sang dans les selles, une fièvre, une coloration jaune de la peau ou des yeux, des réveils nocturnes répétés par la diarrhée, ou tout changement net et durable de vos habitudes.

    Un point mérite d’être martelé : la diarrhée liée aux acides biliaires se traite efficacement. Un médicament prescrit par le médecin (un séquestrant des acides biliaires) peut transformer le quotidien. Personne ne devrait la subir des années sans qu’un diagnostic soit posé.

    Pour aller plus loin

    Camille n’a pas changé de corps. Elle a changé de récit : d’un organe « cassé » et capricieux à un système cohérent, à réserve réduite, dont elle a appris à lire les seuils. C’est souvent là que commence le mieux-être, non dans une plante miracle, mais dans la compréhension.

    Pour les praticien·ne·s, ou les lecteurs et lectrices qui veulent entrer dans le détail du raisonnement, les différents profils cliniques, la façon de les distinguer par le questionnement, les axes d’accompagnement et leurs limites, ainsi qu’une bibliographie scientifique de référence — la fiche praticien complète est disponible en téléchargement libre ci-dessous.


    Cet article a une visée d’information et de compréhension. Il ne remplace ni un diagnostic ni une prise en charge médicale individualisée.

  • Que faire d’un savoir que je désapprouve ?

    Un praticien végane face aux études animales

    Il y a une contradiction que je porte au quotidien et que je n’ai jamais vraiment réussi à classer. Je suis végane, et je suis opposé à l’expérimentation animale. Pas par sensiblerie : par cohérence. Si je refuse d’instrumentaliser un animal pour mon assiette et dans ma vie quotidienne, je vois mal au nom de quoi je l’accepterais pour produire une donnée. Et pourtant, quand je prépare un cours ou que j’argumente une stratégie, je me retrouve régulièrement à m’appuyer sur des études faites sur des animaux. Ça me met mal à l’aise. La question qui m’a tenu éveillé un soir tient en une phrase : présenter ces études fait-il de moi un soutien à ce que je condamne ?

    Je veux prendre cette gêne au sérieux, sans la dissoudre dans une justification confortable, mais sans en faire non plus une paralysie.

    Deux questions qu’on a tort de confondre

    En y regardant de près, il y a deux questions emboîtées, et c’est leur confusion qui crée le malaise.

    La première est rétrospective : que faire d’un savoir déjà produit ? La seconde est prospective : que soutenir pour l’avenir ?

    Citer une étude répond à la première. Mon véganisme, mon refus de la vivisection, relèvent de la seconde. Rien n’oblige à ce que la réponse à l’une contamine l’autre. Le faux dilemme, c’est de croire que je n’ai le choix qu’entre présenter l’étude (donc cautionner) ou l’ignorer (donc rester pur). Il existe une troisième voie, et c’est elle que je vais défendre.

    Démonter le mot « complicité »

    « Complicité » recouvre en réalité trois choses très différentes.

    La complicité causale. Ma citation provoque-t-elle de nouvelles expériences ? Pour une étude déjà publiée, l’effet est quasi nul. Le tort est consommé, irréversiblement. L’animal ne sera ni épargné par mon silence, ni de nouveau sacrifié par ma citation. C’est radicalement différent d’acheter un produit testé sur animaux, où mon achat est un signal de demande bien réel. Ici, la boucle de rétroaction directe n’existe pas.

    La complicité expressive. Citer, est-ce endosser la méthode ? Non. Sauf à confondre des actes de parole distincts. Dire qu’un résultat est vrai et pertinent, ce n’est pas dire que la manière de l’obtenir était légitime, ni recommander de la répéter. Le savoir a une histoire que je n’endosse pas en bloc ; personne ne le fait.

    La complicité systémique. C’est la seule qui me résiste vraiment. Une discipline où les modèles animaux sont massivement cités entretient leur prestige, donc leur centralité, donc, diffusément, sur le long terme, leur reconduction. C’est réel, mais c’est une rétroaction faible et collective, pas une responsabilité individuelle traçable. Il faut la nommer honnêtement, sans en faire le procès d’une simple citation.

    L’objection que je garde intacte

    Je pourrais m’arrêter là, soulagé. Je m’y refuse, parce qu’il existe un contre-argument solide que je ne veux pas écraser.

    L’éthique a une dimension qui ne se réduit pas aux conséquences. Une communauté qui refuse par principe d’utiliser des données arrachées à la souffrance entretient une norme, et les normes finissent par façonner ce qui sera jugé acceptable demain. À cela s’ajoute un argument de dignité : utiliser la donnée, c’est traiter l’animal comme pur moyen, rétrospectivement encore ; refuser, c’est une manière de l’honorer comme plus qu’un instrument.

    Si l’on tient ces deux raisons pour plus lourdes que tout le reste, l’abstention devient cohérente. Je le reconnais. Simplement, elle a un prix et ce prix est élevé.

    L’ignorance désarme celui qui veut abolir

    Voici le cœur de ma position. S’interdire le savoir, c’est s’interdire d’argumenter depuis l’intérieur de la science.

    Pour soutenir de façon convaincante qu’on peut sortir du modèle animal, il faut savoir précisément ce qu’il a donné, et ce que les alternatives peuvent remplacer. Refuser de regarder les études animales, c’est laisser le terrain à ceux qui défendent la vivisection. On se condamne à protester de l’extérieur, depuis la seule indignation morale, légitime, mais facile à disqualifier.

    Et il y a mieux. La critique scientifique du modèle animal rejoint sa critique éthique. La transposition d’une espèce à l’autre échoue bien plus souvent qu’on ne le dit : quantité de cibles thérapeutiques « validées » chez la souris s’effondrent en clinique humaine. C’est précisément l’argument que porte un comité comme Antidote Europe fondé en 2004 par d’anciens chercheurs du CNRS, présidé scientifiquement et non militant au sens sentimental du terme : leur thèse n’est pas seulement « c’est cruel », c’est « aucune espèce n’est fiable pour prédire une autre espèce ». Ils proposent et financent des méthodes pertinentes pour l’humain : toxicogénomique sur cellules humaines, modèles in vitro, approches in silico, organoïdes et systèmes microphysiologiques (les fameux organ-on-chip). D’autres structures portent le même argumentaire scientifique ailleurs en Europe et aux États-Unis (Doctors Against Animal Experiments en Allemagne, le PCRM aux USA).

    Autrement dit : être rigoureux sur les limites des données animales est à la fois de la bonne science et cohérent avec mon refus. L’humilité épistémique n’est pas une concession à l’adversaire, c’est mon meilleur outil. Et dans mon champ, la phyto-aromathérapie, où tant de mécanismes invoqués reposent sur de l’animal ou de l’in vitro extrapolés un peu vite à l’humain, cette vigilance est doublement opérante.

    Un précédent qui éclaire : les cellules HeLa

    Quand on cherche un modèle de résolution, l’analogie qui revient souvent, les données issues d’expériences criminelles, est trop disproportionnée pour être utile : elle écrase tout sous l’horreur et brouille même la validité scientifique.

    Je préfère le cas des cellules HeLa : prélevées sans consentement sur Henrietta Lacks, devenues l’outil le plus universel de la biologie. La réponse de la communauté n’a pas été « cessons d’utiliser HeLa ». Elle a été : reconnaître l’origine, honorer la source, redistribuer une part des bénéfices, et surtout changer les normes de consentement en amont. Réparateur et tourné vers l’avenir, pas abstentionniste. C’est exactement la posture qui me semble juste.

    Où je range, finalement, mon malaise

    Je ne cherche pas à faire disparaître la gêne. Au contraire : une aisance totale à mobiliser ces données serait pire. Cette gêne, je la déplace. Elle ne dit pas « tu n’as pas le droit de citer ». Elle dit « cite en conscience, et pousse pour la suite ».

    Concrètement, voilà ma règle de conduite :

    • privilégier la donnée humaine, clinique ou in vitro, quand elle suffit ;
    • mobiliser l’étude animale seulement quand c’est la meilleure preuve disponible et alors signaler ses limites, y compris translationnelles, pas seulement éthiques ;
    • donner visiblement leur place aux méthodes substitutives et aux structures qui les développent ;
    • citer en connaissance de cause, jamais machinalement.

    Présenter ces études ne fait pas de moi un soutien à l’expérimentation animale. Refuser de les regarder ne sauve aucun animal, le tort est déjà fait, et affaiblit la cause que je porte. La pureté de provenance est un luxe que presque aucun savoir n’offre. La responsabilité, elle, se joue ailleurs : dans l’usage que je fais de ce savoir, et dans ce que je choisis de faire advenir à la place.

  • La diffusion d’huile essentielle comme signal environnemental

    Pour une troisième compréhension du geste aromathérapeutique

    1. Introduction

    Le discours public sur la diffusion des huiles essentielles oscille presque toujours entre deux registres. Le premier est thérapeutique : on diffuse pour assainir l’air, dégager les voies respiratoires, faciliter le sommeil, agir sur l’humeur. Ce registre revendique des effets pharmacologiques précis, parfois étayés par des études cliniques de qualité variable, parfois extrapolés depuis des effets in vitro à des doses sans rapport avec l’exposition ambiante. Le second registre est cosmétique : on diffuse pour le plaisir, pour parfumer un intérieur, pour créer une ambiance. Ce registre ne revendique rien d’autre qu’une expérience sensorielle agréable.

    Ces deux cadres ne sont pas faux. Ils captent chacun une dimension réelle du geste. Mais leur dualité, en occupant tout l’espace discursif, masque une troisième dimension qui me semble tout aussi intéressante que les deux premières, et plus rigoureuse, paradoxalement, parce qu’elle revendique moins.

    L’hypothèse défendue dans cet article est la suivante : la diffusion d’huiles essentielles, dans son régime ambiant et à doses modérées, peut être pensée comme la réintroduction partielle d’un signal environnemental que la condition urbaine moderne a effacé. Ce cadre conceptuel diffère du cadre thérapeutique en ce qu’il ne prétend pas à un effet pharmacologique ciblé sur une pathologie ; il diffère du cadre cosmétique en ce qu’il enracine la pratique dans une physiologie évolutive identifiable. Il s’agit d’un cadre intermédiaire, plus modeste sur l’effet, plus précis sur le mécanisme.

    Je propose d’examiner cette hypothèse en six étapes. La section 2 introduit l’énigme empirique du « bain de forêt » comme point d’ancrage. La section 3 examine puis écarte une analogie séduisante mais structurellement fausse, celle de la vitamine C, pour montrer pourquoi le cadre conceptuel correct n’est pas celui d’un nutriment caché. La section 4 reformule le cadre dans les termes de la xénohormèse et de l’exposome. La section 5 expose la spécificité neuroanatomique du canal olfactif, qui rend ce signal particulier parmi les autres signaux environnementaux possibles. La section 6 mobilise les données empiriques de la psychologie environnementale pour montrer que la « mémoire biophile » n’est pas une spéculation mais un phénomène mesurable. La section 7 examine les implications pour la pratique, ainsi que les limites et risques d’une telle reformulation.

    2. Le bain de forêt comme énigme empirique

    Le point de départ contemporain de cette réflexion est l’ensemble des travaux sur le shinrin-yoku (bain de forêt) menés depuis les années 2000 au Japon, principalement par Qing Li et son équipe à la Nippon Medical School. Dans une série d’études, Li a montré que des sujets exposés pendant plusieurs jours à un environnement forestier, typiquement deux à trois jours de marche en forêt, présentent une élévation mesurable et durable de l’activité de leurs cellules NK (natural killer), un type de lymphocytes impliqués dans la défense antivirale et antitumorale précoce (Li, 2010 ; Li et al., 2008).

    Les chiffres rapportés varient selon les protocoles, mais l’ordre de grandeur typique se situe autour d’une augmentation de 30 à 50% de l’activité cytotoxique NK, avec une persistance mesurable jusqu’à un mois après l’exposition. Plusieurs hypothèses confondantes ont été testées et écartées : l’effet n’est pas attribuable à la qualité de l’air seule, ni à l’exercice physique, ni à la déconnexion numérique, puisque des groupes témoins exposés à des conditions équivalentes en milieu urbain n’ont pas présenté la même réponse.

    L’hypothèse explicative qui s’est imposée par défaut est celle des phytoncides — terme japonais désignant l’ensemble des composés organiques volatils émis par les plantes, et notamment les monoterpènes comme l’α-pinène, le β-pinène, le limonène, et le 3-carène. L’idée est que l’inhalation chronique de ces molécules dans l’environnement forestier exerce une modulation immune, possiblement via des effets anti-inflammatoires et anti-stress (cortisol, axe HPA).

    Cette explication reste partielle. L’attribution causale précise à une ou plusieurs molécules est difficile, parce que la matrice forestière comprend simultanément un cocktail moléculaire complexe, une stimulation multisensorielle (lumière diffractée, sons, humidité, microbiote aéroporté), et une réduction du stress urbain. Néanmoins, des études complémentaires sur l’inhalation contrôlée de phytoncides extraits ont montré des effets immuns mesurables (Li et al., 2009), ce qui rend l’hypothèse de la composante moléculaire vraisemblable sans en faire la seule explication.

    Pour notre propos, ce qui importe n’est pas de trancher la question causale en détail, mais de constater qu’il existe un faisceau d’observations empiriques cohérentes selon lesquelles l’exposition à un environnement biotique riche produit chez l’humain des effets physiologiques mesurables et reproductibles, qu’on ne retrouve pas dans des environnements abiotiques équivalents.

    3. Pourquoi l’analogie avec la vitamine C ne tient pas

    Une intuition spontanée surgit face à ces données : si notre corps réagit favorablement à une exposition aux molécules végétales, n’est-ce pas parce qu’il en a besoin ? Et plus précisément : ne sommes-nous pas dans une configuration analogue à celle de la vitamine C, c’est-à-dire dépendants d’une molécule que nous ne synthétisons pas mais que notre alimentation ou notre environnement ancestral fournissait en permanence ?

    Cette analogie est intuitivement séduisante, mais elle ne résiste pas à un examen mécanistique. La compréhension de ses limites est instructive parce qu’elle conduit à une reformulation plus juste du cadre conceptuel.

    La vitamine C présente un ensemble de caractéristiques qui en font un nutriment essentiel au sens strict. Premièrement, l’espèce humaine a perdu la capacité de la synthétiser : le gène GULO (L-gulonolactone oxidase), qui catalyse la dernière étape de la biosynthèse de l’ascorbate, a été pseudogénisé chez nos ancêtres primates il y a environ 60 à 75 millions d’années (Drouin et al., 2011 ; Nishikimi & Yagi, 1991). Cette perte est documentée moléculairement et reproduite chez d’autres lignées (cobayes, certaines chauves-souris). Deuxièmement, l’organisme humain dispose d’une machinerie dédiée à la conservation de l’ascorbate : transporteurs spécifiques (SVCT1 et SVCT2), réabsorption rénale active, et intégration comme cofacteur dans plusieurs enzymes essentielles (hydroxylases du collagène, dopamine-β-hydroxylase, carnitine biosynthesis). Troisièmement, son absence prolongée produit un syndrome clinique reproductible — le scorbut — avec une histoire pathologique bien documentée.

    L’α-pinène et les autres monoterpènes ne cochent aucune de ces cases. Premièrement, l’espèce humaine n’a jamais synthétisé ces molécules : les mammifères ne possèdent pas les terpène-synthases nécessaires, et il n’y a donc pas de « perte » de biosynthèse à compenser. Deuxièmement, l’organisme humain traite ces molécules comme des xénobiotiques classiques : oxydation par les cytochromes P450 (notamment CYP2B6) en métabolites comme le verbénol, la verbénone, et autres dérivés oxygénés ; conjugaison de phase II ; excrétion biliaire ou rénale (Salehi et al., 2019). Cette voie de clairance est l’inverse d’une voie de rétention. Troisièmement, aucun syndrome de carence n’a été identifié chez les populations historiquement éloignées des environnements riches en monoterpènes.

    L’analogie avec la vitamine C est donc structurellement fausse. L’α-pinène n’est pas un nutriment caché. Et ce constat semble à première vue invalider l’idée d’un « besoin » physiologique de l’organisme pour ces molécules.

    Mais c’est précisément la conclusion erronée à tirer. L’absence d’un statut de nutriment essentiel n’implique pas l’absence de pertinence physiologique. Elle invite à reformuler le cadre dans des termes différents.

    4. Reformulation : signal environnemental et exposome

    Le cadre conceptuel correct n’est pas celui du nutriment essentiel, mais celui du signal environnemental. Cette distinction est cruciale et permet d’articuler les données empiriques sans surenchérir sur leurs implications.

    Un nutriment essentiel est une molécule dont l’absence produit une pathologie identifiable et dont la présence est intégrée à des voies métaboliques précises. Un signal environnemental, en revanche, est une molécule (ou une classe de molécules) dont la présence n’est pas requise pour le fonctionnement de base de l’organisme, mais qui module des paramètres physiologiques de manière biologiquement adaptative dans un environnement où elle est statistiquement attendue.

    L’hypothèse de la xénohormèse, formulée par Howitz et Sinclair (2008), constitue le cadre théorique pertinent. Elle propose que les animaux ont co-évolué avec les plantes dans des environnements où les composés volatils végétaux signalent l’état de l’écosystème, et que les organismes hétérotrophes ont développé des mécanismes de réponse à ces signaux. Réponses qui peuvent inclure des effets adaptatifs (modulation immune, anti-inflammatoire, antioxydante) sans que la molécule en question soit pour autant un nutriment au sens strict. Les polyphénols (resvératrol, curcuminoïdes) et les monoterpènes entreraient dans cette catégorie de signaux environnementaux modulateurs.

    Ce cadre est cohérent avec le concept plus large d’exposome introduit par Wild (2005) : l’ensemble des expositions environnementales auxquelles un organisme est soumis au cours de sa vie, qui complète l’information génétique pour expliquer les phénotypes de santé. L’exposome inclut la lumière, les microbes, les composés chimiques de l’air et de l’alimentation, et ce que je propose d’appeler à la suite de différents auteurs l’exposome moléculaire végétal — l’ensemble des composés volatils émis par les plantes auxquels un organisme est exposé.

    Cette reformulation a une conséquence importante. Elle permet de prendre au sérieux l’hypothèse selon laquelle la condition urbaine moderne, en réduisant drastiquement l’exposition aux composés végétaux volatils, constitue un appauvrissement de l’exposome dont les effets sont nécessairement diffus, non spécifiques, et difficiles à isoler dans des études cliniques classiques — mais empiriquement plausibles. Les effets ne se manifesteront pas comme une « carence en α-pinène », mais comme une dérégulation cumulative de paramètres immuns, inflammatoires, et neurovégétatifs, qui interagit avec d’autres dimensions de l’exposome appauvri (microbiote, lumière, mouvement).

    Dans ce cadre, la diffusion d’huiles essentielles peut être pensée non comme un soin ciblé ni comme un simple plaisir olfactif, mais comme une réintroduction partielle d’un signal environnemental attendu par notre physiologie évolutive. Cette formulation a l’avantage d’être épistémiquement modeste, elle ne revendique pas un effet curatif spécifique et empiriquement défendable, parce qu’elle s’appuie sur des phénomènes mesurables et non sur une analogie trompeuse.

    5. La spécificité neuroanatomique du canal olfactif

    Si l’on accepte le cadre du signal environnemental, une question subsiste : pourquoi la voie olfactive serait-elle particulièrement pertinente parmi toutes les voies sensorielles possibles de réintroduction d’un signal naturel ? La réponse tient à une particularité neuroanatomique de l’olfaction qui mérite d’être détaillée.

    Les modalités sensorielles classiques (vision, audition, somesthésie, gustation) partagent une architecture commune : l’information sensorielle est relayée par le thalamus avant d’atteindre les aires corticales primaires, où elle est traitée puis intégrée à des aires associatives plus élaborées. Cette voie thalamique constitue un point de passage obligé qui structure la perception consciente.

    L’olfaction, seule parmi les sens, ne suit pas cette architecture. L’information olfactive captée par l’épithélium olfactif est transmise au bulbe olfactif, qui projette directement sur le cortex piriforme, l’amygdale, le cortex entorhinal et certaines régions de l’hippocampe c’est-à-dire vers des structures limbiques impliquées dans la mémoire affective, l’évaluation hédonique, et la régulation du système nerveux autonome (Gottfried & Zald, 2005 ; Sela & Sobel, 2010). La voie thalamo-corticale existe, mais elle est subsidiaire et tardive dans le traitement.

    Cette architecture explique plusieurs propriétés bien documentées de l’olfaction humaine : la difficulté à verbaliser les odeurs, la robustesse de la mémoire olfactive (souvent plus durable que les mémoires visuelles équivalentes), et surtout la capacité des stimuli olfactifs à déclencher des réponses émotionnelles et autonomes avant même que l’identification consciente ne soit achevée. Les phénomènes proustiens de réminiscence affective déclenchée par une odeur ne sont pas des curiosités littéraires ; ils sont des manifestations directes de cette architecture neuroanatomique particulière.

    Pour notre propos, cette particularité a une conséquence importante : un stimulus olfactif est une voie privilégiée pour atteindre les structures qui modulent l’état physiologique interne, sans passer par l’analyse consciente. Là où une représentation visuelle de la nature (photographie, vidéo, fenêtre sur jardin) doit être décodée et identifiée pour produire ses effets, un stimulus olfactif agit plus directement.

    Il faut ajouter une distinction de nature sémiotique qui me semble pertinente. Une représentation visuelle de la nature est, au sens peircien, un signe iconique ou symbolique : elle évoque la nature par ressemblance ou par convention, mais n’est pas elle-même la nature. Un stimulus olfactif issu d’une plante (que ce soit en forêt ou via une diffusion d’huile essentielle) est un signe indiciel : la molécule présente dans l’air est physiquement et chimiquement identique à celle émise par la plante, et il existe un lien causal réel entre le signe et ce qu’il signifie. Le cerveau qui reçoit le signal olfactif ne reçoit pas une représentation de la nature ; il reçoit un fragment chimique authentique de cette nature.

    Cette précision sémiotique n’est pas une coquetterie philosophique : elle explique pourquoi le canal olfactif fait ce que les canaux purement représentationnels ne font pas, et pourquoi l’effet d’une diffusion ne peut pas être réduit à une « simulation » de la nature.

    6. Données empiriques sur la latence biophile

    L’hypothèse selon laquelle l’organisme humain conserve une réceptivité aux signaux environnementaux naturels, ce qu’on peut appeler à la suite de E.O. Wilson une biophilie (Wilson, 1984 ; Kellert & Wilson, 1993) n’est pas seulement une spéculation théorique. Plusieurs lignes de recherche empirique convergent vers un même constat : il existe chez l’humain contemporain une préférence pour les stimuli naturels qui se manifeste par des effets physiologiques et comportementaux mesurables, indépendamment de la déclaration consciente des sujets.

    L’étude fondatrice est celle d’Ulrich (1984), publiée dans Science. Sur une cohorte de 46 patients ayant subi une cholécystectomie dans un hôpital de Pennsylvanie entre 1972 et 1981, Ulrich a comparé la récupération post-opératoire selon l’orientation de la chambre. Les patients dont la fenêtre donnait sur un bouquet d’arbres ont présenté une durée d’hospitalisation significativement plus courte (en moyenne 7,96 jours contre 8,71 jours, soit environ 0,75 jour de moins), une consommation moindre d’antalgiques puissants, et moins de complications post-opératoires mineures, comparés aux patients dont la fenêtre donnait sur un mur de briques. L’échantillon est limité, mais le protocole appariait soigneusement les variables confondantes (équipe soignante, étage, période, etc.), ce qui rend le résultat difficile à attribuer à autre chose qu’à la différence de vue.

    Cette étude pionnière a été suivie par un corpus important de recherches en psychologie environnementale, dont les principales lignes peuvent être résumées ainsi.

    Kaplan et Kaplan (1989) ont théorisé l’Attention Restoration Theory, selon laquelle les environnements naturels favorisent la récupération de l’attention dirigée (épuisée par les exigences cognitives urbaines) en sollicitant une forme d’attention « sans effort » (soft fascination). Plusieurs études expérimentales ont depuis montré que des promenades en environnement naturel améliorent les performances cognitives à des tâches d’attention dirigée, comparées à des promenades urbaines de durée et d’intensité physique équivalentes (Berman, Jonides & Kaplan, 2008).

    Kuo et Sullivan (2001a, 2001b), dans une série d’études sur des résidents d’immeubles sociaux à Chicago, ont mis en évidence des corrélations entre la quantité de végétation visible depuis le logement et plusieurs indicateurs de santé mentale et de comportement social : moindre fatigue mentale, moindre agressivité interpersonnelle, et corrélation plus surprenante, moindre incidence de violences criminelles dans les zones plus végétalisées. Les protocoles statistiques contrôlent partiellement les variables socio-économiques confondantes.

    Au-delà de ces études classiques, il existe également des observations comportementales fines, notamment en urbanisme et en éthologie urbaine, montrant que les piétons en ville présentent des préférences spatiales révélées pour les itinéraires comportant de la végétation, et qu’ils dévient leur trajectoire pour passer à proximité d’arbres, sans en avoir conscience explicite. Ces préférences révélées constituent, au sens où Daniel Kahneman et l’économie comportementale l’entendent, des données plus robustes que les préférences déclarées, parce qu’elles ne sont pas filtrées par la rationalisation post-hoc.

    L’ensemble de ces données ne démontre pas mécanistiquement le lien causal entre exposition aux composés volatils végétaux et effets biophiles, ce sont des observations multimodales qui combinent vue, odeur, son, et association globale d’un environnement biotique. Mais elles établissent le fait empirique d’une réceptivité humaine persistante aux signaux naturels, qui opère en grande partie sous le seuil de la conscience délibérative.

    7. Implications, limites et risques

    Si l’on accepte l’ensemble du cadre développé jusqu’ici, la pratique de la diffusion d’huiles essentielles en intérieur urbain peut être pensée comme une réintroduction modeste d’un fragment de l’exposome moléculaire végétal absent de l’environnement urbain typique. Cette formulation a plusieurs avantages.

    Elle évite la surenchère pharmacologique caractéristique d’une partie de la littérature aromathérapeutique, qui extrapole des effets in vitro à doses élevées vers des conditions ambiantes où les concentrations atteintes sont inférieures de plusieurs ordres de grandeur. À titre d’ordre de grandeur, l’air d’une forêt de conifères contient typiquement entre 0,5 et 5 μg/m³ d’α-pinène ; une diffusion atmosphérique modérée en intérieur peut atteindre des concentrations de l’ordre de 50 à 500 μg/m³, mais sur des durées limitées. Ces doses ne reproduisent pas les effets pharmacologiques systémiques étudiés en laboratoire à des concentrations de l’ordre du mg/kg, mais elles peuvent suffire à délivrer un signal modulateur perceptible, par les voies olfactives notamment.

    Elle articule la pratique individuelle à une problématique collective. Si l’exposome moléculaire végétal urbain est appauvri, alors les solutions ne se limitent pas aux pratiques individuelles de diffusion : elles impliquent aussi la végétalisation urbaine, la perméabilité des espaces verts, l’aération des logements, la présence de plantes vivantes. La diffusion individuelle s’inscrit comme une réponse partielle parmi d’autres, et non comme un substitut à un changement environnemental plus large.

    Plusieurs limites doivent cependant être posées clairement.

    Premièrement, le cadre proposé est conceptuellement cohérent et empiriquement plausible, mais il n’est pas démonté à un niveau mécanistique fin. L’attribution causale précise des effets observés en forest bathing aux molécules volatiles, plutôt qu’à d’autres composantes de l’exposition, reste partielle. Les transpositions à des conditions de diffusion en intérieur sont encore moins étudiées spécifiquement.

    Deuxièmement, il existe un risque de dérive interprétative qui doit être identifié. La pratique de la diffusion peut fonctionner de deux manières fonctionnellement distinctes : soit comme un rappel qui réactive la conscience d’un lien à la nature et qui s’articule à d’autres pratiques (sortie en forêt, jardinage, attention écologique) ; soit comme un palliatif qui rend la déconnexion urbaine plus supportable et tend à neutraliser la motivation à modifier l’environnement structurel. Les deux fonctions ne sont pas mutuellement exclusives et coexistent vraisemblablement selon les usages. Mais il importe que le praticien et le public soient conscients de cette ambiguïté fonctionnelle, et que la pratique soit cadrée pour favoriser la première fonction plutôt que la seconde.

    Troisièmement, le cadre développé concerne spécifiquement la diffusion ambiante à doses modérées. Il ne s’applique pas tel quel aux régimes pharmacologiques classiques de l’aromathérapie (voie orale, application cutanée concentrée, suppositoires, diffusion intensive ciblée), qui relèvent d’une logique différente, pharmacologie standard avec courbes dose-réponse, indications cliniques précises, contre-indications, métabolisme hépatique sollicité. Confondre les deux régimes est un piège fréquent : justifier le second par la rationalité du premier, ou disqualifier le premier sur la base des limites du second, sont deux erreurs symétriques.

    8. Conclusion

    L’argument central de cet article tient en une formule : la diffusion d’huiles essentielles, dans son régime ambiant, ne reconstitue pas la nature absente, elle réactive la mémoire qu’on en a. Cette mémoire, dont les recherches en psychologie environnementale montrent qu’elle est intacte sous l’urbain et opère en partie sous le seuil de la délibération, n’est pas une essence mystique ; c’est l’ensemble des dispositifs neurophysiologiques calibrés par plusieurs centaines de milliers d’années de coévolution avec un environnement biotique riche.

    Cette reformulation a une valeur épistémique : elle remplace une revendication d’effet pharmacologique faiblement étayée par une revendication de modulation environnementale mieux fondée. Elle a aussi une valeur pratique : elle articule le geste individuel à une question collective (l’aménagement urbain), et elle permet de cadrer la pratique pour qu’elle fonctionne comme un rappel et non comme un palliatif.

    Elle a enfin une valeur réflexive pour la pratique aromathérapeutique elle-même : en distinguant clairement le régime pharmacologique du régime environnemental de la diffusion, elle permet de défendre chacun sur ses propres bases sans que les limites de l’un fragilisent l’autre. Cette distinction conceptuelle, banale en pharmacologie mais souvent absente dans le discours aromathérapeutique courant, me semble une condition de la rigueur épistémique de la discipline.


    Références bibliographiques

    Berman, M. G., Jonides, J., & Kaplan, S. (2008). The cognitive benefits of interacting with nature. Psychological Science, 19(12), 1207–1212.

    Drouin, G., Godin, J. R., & Pagé, B. (2011). The genetics of vitamin C loss in vertebrates. Current Genomics, 12(5), 371–378.

    Gottfried, J. A., & Zald, D. H. (2005). On the scent of human olfactory orbitofrontal cortex: meta-analysis and comparison to non-human primates. Brain Research Reviews, 50(2), 287–304.

    Howitz, K. T., & Sinclair, D. A. (2008). Xenohormesis: sensing the chemical cues of other species. Cell, 133(3), 387–391.

    Kahneman, D. (2011). Thinking, Fast and Slow. Farrar, Straus and Giroux.

    Kaplan, R., & Kaplan, S. (1989). The Experience of Nature: A Psychological Perspective. Cambridge University Press.

    Kaplan, S. (1995). The restorative benefits of nature: Toward an integrative framework. Journal of Environmental Psychology, 15(3), 169–182.

    Kellert, S. R., & Wilson, E. O. (Eds.). (1993). The Biophilia Hypothesis. Island Press.

    Kuo, F. E., & Sullivan, W. C. (2001a). Aggression and violence in the inner city: Effects of environment via mental fatigue. Environment and Behavior, 33(4), 543–571.

    Kuo, F. E., & Sullivan, W. C. (2001b). Environment and crime in the inner city: Does vegetation reduce crime? Environment and Behavior, 33(3), 343–367.

    Li, Q. (2010). Effect of forest bathing trips on human immune function. Environmental Health and Preventive Medicine, 15(1), 9–17.

    Li, Q., Morimoto, K., Kobayashi, M., Inagaki, H., Katsumata, M., Hirata, Y., Hirata, K., Suzuki, H., Li, Y. J., Wakayama, Y., Kawada, T., Park, B. J., Ohira, T., Matsui, N., Kagawa, T., Miyazaki, Y., & Krensky, A. M. (2008). Visiting a forest, but not a city, increases human natural killer activity and expression of anti-cancer proteins. International Journal of Immunopathology and Pharmacology, 21(1), 117–127.

    Li, Q., Nakadai, A., Matsushima, H., Miyazaki, Y., Krensky, A. M., Kawada, T., & Morimoto, K. (2009). Phytoncides (wood essential oils) induce human natural killer cell activity. Immunopharmacology and Immunotoxicology, 28(2), 319–333.

    Morin, E. (1977–2004). La Méthode (6 volumes). Éditions du Seuil.

    Nishikimi, M., & Yagi, K. (1991). Molecular basis for the deficiency in humans of gulonolactone oxidase, a key enzyme for ascorbic acid biosynthesis. American Journal of Clinical Nutrition, 54(6 Suppl), 1203S–1208S.

    Salehi, B., Upadhyay, S., Erdogan Orhan, I., Kumar Jugran, A., L. D. Jayaweera, S., A. Dias, D., Sharopov, F., Taheri, Y., Martins, N., Baghalpour, N., Cho, W. C., & Sharifi-Rad, J. (2019). Therapeutic potential of α- and β-pinene: A miracle gift of nature. Biomolecules, 9(11), 738.

    Sela, L., & Sobel, N. (2010). Human olfaction: a constant state of change-blindness. Experimental Brain Research, 205(1), 13–29.

    Ulrich, R. S. (1984). View through a window may influence recovery from surgery. Science, 224(4647), 420–421.

    Wild, C. P. (2005). Complementing the genome with an « exposome »: The outstanding challenge of environmental exposure measurement in molecular epidemiology. Cancer Epidemiology, Biomarkers & Prevention, 14(8), 1847–1850.

    Wilson, E. O. (1984). Biophilia. Harvard University Press.


  • Démystifier la notion de totum en aromathérapie

    Dans le domaine de la pharmacognosie clinique, le concept de totum désigne l’intégralité des molécules aromatiques d’une plante. Par extension, en aromathérapie la notion de totum recouvre simplement le fait pour une huile essentielle de contenir les principes actifs volatils obtenus par la distillation à la vapeur d’eau. Donc juste une partie infime du totum de la plante, ce qui en soi s’éloigne déjà de la définition originelle. Parler du totum en aromathérapie est donc déjà un non-sens même si une huile essentielle peut contenir de quelques dizaines à plusieurs centaines de constituants.

    L’huile essentielle de tea tree (Melaleuca alternifolia) constitue un exemple intéressant pour parler de la notion de totum. Si le paradigme traditionnel de l’aromathérapie soutient que la synergie naturelle du totum de l’huile essentielle est systématiquement supérieure à l’action d’un principe actif isolé, la recherche contemporaine impose une vision plus nuancée.

    L’efficacité du mélange dépend strictement du contexte thérapeutique et du pathogène ciblé, révélant que le totum n’est pas une réponse universelle mais un équilibre dynamique parfois perfectible.

    L’huile de Melaleuca alternifolia se distingue par une composition riche d’environ 100 composés, dominée par plusieurs familles biochimiques majeures. Le terpinène-4-ol est le constituant prédominant (environ 40 %), classé parmi les monoterpénols.

    On retrouve également dans ce totum :

    • D’autres monoterpénols : l’alpha-terpinéol.
    • Des oxydes (éthers) : le 1,8-cinéole (eucalyptol).
    • Des monoterpènes : l’alpha-terpinène, le gamma-terpinène, le sabinène et le terpinolène.

    Si le terpinène-4-ol est souvent désigné comme l’agent actif principal, son interaction avec les molécules minoritaires définit la capacité biocide réelle de l’huile.

    Le tea-tree face au Demodex

    Le parasite Demodex (D. folliculorum), un acarien ectoparasite colonisant les follicules pileux et les glandes sébacées humaines, est souvent impliqué dans les blépharites et la rosacée. Dans ce contexte précis, l’approche par le totum se heurte à des limites pharmacologiques. L’étude de Tighe et al. (2013) a démontré que le terpinène-4-ol isolé est plus efficace pour éradiquer les acariens que l’huile essentielle entière.

    Effet antagoniste avéré : L’interaction entre le terpinène-4-ol (le principal agent acaricide de l’huile d’arbre à thé) et l’alpha-terpinéol crée une « synergie négative » ou un effet antagoniste dans le contexte de l’éradication des acariens Demodex.

    Augmentation du temps de survie du parasite : Lorsque le terpinène-4-ol est mélangé à l’alpha-terpinéol, l’efficacité acaricide est inhibée et le temps de survie des acariens augmente de façon significative comparativement à l’utilisation du terpinène-4-ol de manière isolée. Par exemple, lors de tests in vitro, la combinaison de ces deux composants a donné un temps de survie doublé du parasite, démontrant ainsi que l’alpha-terpinéol réduit l’efficacité du terpinène-4-ol.

    Explication biochimique et physique : Cet antagonisme pourrait provenir du fait que la présence d’alpha-terpinéol modifie la solubilité ou la dynamique de pénétration du mélange. Cette interférence empêcherait le terpinène-4-ol de pénétrer efficacement la cuticule de l’acarien ou son système respiratoire.

    Supériorité de l’utilisation isolée : Les chercheurs concluent que l’utilisation du terpinène-4-ol seul est supérieure car elle élimine les effets indésirables et antagonistes d’autres ingrédients, maximisant ainsi sa puissance brute pour détruire les Demodex.

    Ces effets antagonistes ne sont malheureusement pas compensés par la synergie positive que procure l’association du terpinolène-4-ol et du terpinolène un autre principe actif du tea-tree.

    On a donc pour le tea-tree face au Demodex deux effets opposés

    • Une coopération bénéfique entre le terpinène-4-ol et le terpinolène, renforçant l’action acaricide.
    • Un effet pénalisant de l’alpha-terpinéol (pourtant puissant lorsqu’il est seul) qui réduit l’efficacité du terpinène-4-ol contre le parasite lorsqu’ils sont combinés.

    Pour le traitement de la démodécie, l’utilisation d’un extrait enrichi ou d’un isolat de terpinène-4-ol est donc préférable. Cette « aromathérapie de précision » permet de s’affranchir des interactions antagonistes naturelles pour maximiser la puissance thérapeutique.

    La force de la synergie contre les bactéries et les virus

    À l’inverse, face aux bactéries et aux virus, la complexité du totum redevient son principal atout. L’activité antibactérienne majeure contre Staphylococcus aureus (notamment le SARM, résistant à la méticilline) et Escherichia coli. Pour le SARM, les valeurs de concentration minimale inhibitrice (MIC) et de concentration minimale bactéricide (MBC) sont particulièrement basses, se situant respectivement entre 0,25 % et 0,5 %.

    Le mécanisme d’action est multidimensionnel grâce à la complémentarité des monoterpénols et des oxydes :

    1. Perméabilisation membranaire : Les molécules lipophiles perturbent l’intégrité de la membrane plasmique.
    2. Fuites ioniques : Cette altération provoque une perte critique de potassium.
    3. Inhibition respiratoire : Le mélange inhibe spécifiquement la respiration glucose-dépendante de la bactérie, entraînant sa mort.

    Sur le plan antiviral, le tea tree se montre particulièrement efficace contre les virus enveloppés (Grippe, HSV-1). Les recherches (Garrozzo 2009, Koch 2007) indiquent que le terpinène-4-ol agit lors de la phase d’adsorption (attachement à la membrane cellulaire). En interrompant les protéines de surface comme l’hémagglutinine, le totum empêche l’entrée du virus dans la cellule hôte, une action plus complexe à obtenir avec une molécule isolée.

    Synthèse des interactions

    Le mélange de molécules aromatiques ne produit pas systématiquement une amélioration des propriétés. On décrit quatre états d’interaction biochimique :

    Type d’interactionEffet observé
    IndifférenceL’activité est indépendante de la présence d’une autre molécule.
    AdditionL’effet global est égal à la somme des effets individuels (cumulatif).
    SynergieL’effet est significativement supérieur à la somme des composants.
    AntagonismeLa présence d’une molécule diminue l’activité d’une autre.

    Le tea tree illustre parfaitement cette dualité. Il bénéficie d’une synergie puissante contre les bactéries, mais subit un antagonisme marqué face au Demodex. En pratique les phénomènes d’indifférence ou d’antagonisme sont souvent ignorés postulant à tort une synergie universelle.

    Vers une aromathérapie de précision

    Le totum n’est pas une « potion magique » mais un complexe biochimique dont l’efficacité est strictement corrélée à la cible biologique. Pour une meilleure pratique on doit adopter une démarche rigoureuse et honnête qui nous nous permet de choisir les principes actifs pertinents et se rappeler la question fondamentale :


    Quels principes actifs on cherche à mobiliser, et quelle forme d’extraction permet d’y accéder ?

    Références scientifiques

    Étude sur le terpinène-4-ol et les acariens (Demodex) :

    • Tighe, S., Gao, Y.-Y., & Tseng, S. C. G. (2013). Terpinen-4-ol is the most active ingredient of tea tree oil to kill Demodex mites. Translational Vision Science & Technology, 2(7), 2. https://doi.org/10.1167/tvst.2.7.2

    Études sur le terpinène-4-ol, les huiles essentielles et la phase d’adsorption virale :

    • Garozzo, A., Timpanaro, R., Bisignano, B., Furneri, P. M., Bisignano, G., & Castro, A. (2009). In vitro antiviral activity of Melaleuca alternifolia essential oil. Letters in Applied Microbiology, 49(6), 806–808. https://doi.org/10.1111/j.1472-765X.2009.02740.x
    • Koch, C., Reichling, J., Schneele, J., & Schnitzler, P. (2008). Inhibitory effect of essential oils against herpes simplex virus type 2. Phytomedicine, 15(1-2), 71–78. https://doi.org/10.1016/j.phymed.2007.09.003 (Pré-publiée en 2007, décrivant l’action sur l’adsorption virale).